Les protéines de nucléation initient la polymérisation des microfilaments d'actine en stabilisant les premiers monomères d'actine G, les formines constituant la principale famille responsable de la nucléation et de l'élongation des microfilaments linéaires.
Vue d'ensemble de la nucléation
La nucléation correspond à la formation d'un noyau stable de quelques monomères d'actine G, généralement un trimère, constituant l'étape limitante de la polymérisation spontanée des microfilaments d'actine in vitro.
Les protéines de nucléation permettent de franchir cette barrière énergétique en stabilisant un noyau de polymérisation et constituent les principaux régulateurs de l'initiation de l'assemblage des microfilaments d'actine(Actin Nucleation 2014).
celle des formines, responsables de la nucléation et de l'élongation des longs microfilaments d'actine linéaires (fibres de stress, anneaux contractiles…),
celle du complexe Arp2/3, responsable de la formation de réseaux de microfilaments d'actine ramifiés (lamellipodes, bord frontal des cellules migratrices…),
Remarque : certaines ABP multifonctionnelles qui ne constituent pas des nucléateurs spécialisés peuvent également favoriser la nucléation des microfilaments d'actine.
C'est notamment le cas de la villine, protéine de la famille de la gelsoline qui possède également des activités de réticulation, de coiffage et de sectionnement.
Protéines de nucléation de l'actine
(Figure : vetopsy.fr)
2. Les autres familles de protéines de liaison à l'actine comprennent :
des protéines d’élongation qui favorisent l’ajout de monomères d’actine G à l’extrémité (+) et accompagnent la croissance du microfilament (formines, Ena/VASP, …),
des protéines motrices, les myosines, qui utilisent les microfilaments d'actine comme rails moléculaires pour produire des forces et des mouvements cellulaires,
L'ankyrine participe également à ces complexes d'ancrage par son interaction avec les spectrines et diverses protéines membranaires, mais sans se lier directement aux microfilaments d'actine.
Remarque : certaines ABP sont dites multifonctionnelles car elles participent à plusieurs mécanismes.
La localisation et l'activation des différentes protéines de nucléation contribuent à la formation de réseaux de microfilaments d'actine spécialisés, dont l'organisation est étroitement régulée en fonction des besoins de la cellule.
La famille des formines constitue un vaste groupe de protéines multidomaines, représenté par plus de 1 000 protéines réparties chez les eucaryotes (Formins in Human Disease 2023).
Les formines sont les principaux nucléateurs des microfilaments d'actine linéaires dont elles assurent également leur élongation processive en restant associées à l'extrémité barbée (+), contrairement au complexe Arp2/3 qui génère des réseaux ramifiés.
Cette classification phylogénétique reste largement utilisée, bien que les publications récentes décrivent le plus souvent directement les sept sous-familles.
a. Le groupe I comprend :
FMNL (Formin-Like), anciennement FRL, Formin-Related gene in Leukocytes), FMNL1, FMNL2 et FMNL3, principalement impliquées dans la migration cellulaire, les filopodes et les invadopodes,
Dia (Diaphanous), mDia1, mDia2 et mDia3,formines les plus étudiées chez les vertébrés et principales formines impliquées dans la nucléation et l'élongation des microfilaments d'actine ainsi que dans les interactions avec les microtubules,
Delphilin (GRID2IP ou Glutamate Receptor Ionotropic Delta 2 Interacting Protein), principalement exprimée dans les neurones du cervelet.
b. Le groupe II est constitué uniquement des FMN (Formin), qui correspondent aux formines au sens historique du terme, FMN1 et FMN2, principalement impliquées dans le développement embryonnaire et neuronal.
Les formines sont des protéines multidomaines dont l'organisation est largement conservée au cours de l'évolution. qui possèdent toutes (Formin’ cellular structures 2014) :
un domaine FH1 (Formin Homology 1),
un domaine FH2 (Formin Homology 2),
une région N-terminale, anciennement regroupée sous le terme de domaine FH3 (Formin Homology 3), comprend plusieurs domaines régulateurs impliqués dans leur activation et leur auto-inhibition.
FH1
1. FH1, constitué de multiples motifs riches en proline (PRD), est un domaine dont la longueur varie selon les différentes formines.
Domaines FH2 de la formine et liaison avec l'actine
(Figure : vetopsy.fr avec l'aimable
autorisation de Roberto Dominguez)
Peu structuré, il est souvent représenté comme une région flexible reliant les autres domaines de la protéine.
2. FH1 interagit avec un grand nombre de protéines :
2. Le dimère FH2 reste associé à l'extrémité barbée (+) du microfilament d'actine en croissance et en accompagne l'élongation de manière processive, tout en permettant l'incorporation successive de nouveaux monomères d'actine G.
Remarque : certaines formines inversées, comme INF2 (INverted Formin 2), présentent une organisation particulière de leurs domaines FH1 et FH2, dont l'ordre est inversé par rapport aux autres formines.
un domaine GBD (GTPase-Binding Domain), anciennement RBD (Rho Binding Domain) qui se lie aux petites GTPases de la famille Rho,
Structure de la formine,
dimères (autoinhibé et activé) et liaisons
(Figure : vetopsy.fr)un domaine DID (Diaphanous Inhibitory Domain), reconnu par DAD,
Remarque : plusieurs études suggèrent que, chez certaines formines comme mDia1, le domaine DAD pourrait contribuer à l'activité de nucléation et d'élongation assurée principalement par les domaines FH1 et FH2.
DAD se lie à des monomères d'actine et cette activité, distincte de son rôle dans l'auto-inhibition, semble intervenir lors de la nucléation, mais pas au cours de l'élongation du microfilament.
une forme autoinhibée, repliée sur elle-même par l'interaction entre le domaine DAD C-terminal et le domaine DID N-terminal,
une forme activée, déployée après la fixation d'une petite GTPase de la famille Rho sur le domaine GBD, libérant ainsi les domaines FH1 et FH2, qui assurent alors la nucléation et l'élongation des microfilaments d'actine
Interactions des formines
Les formines interagissent avec de nombreuses protéines impliquées dans la régulation de leur activité et de la dynamique du cytosquelette ( tableau) :


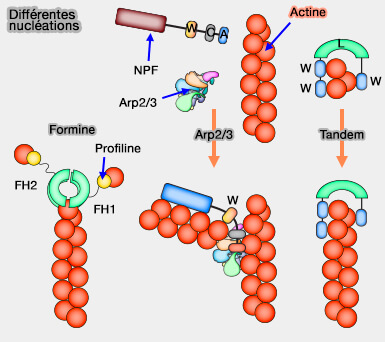

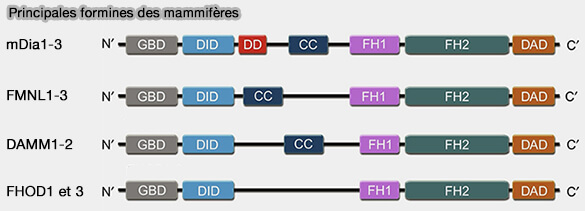
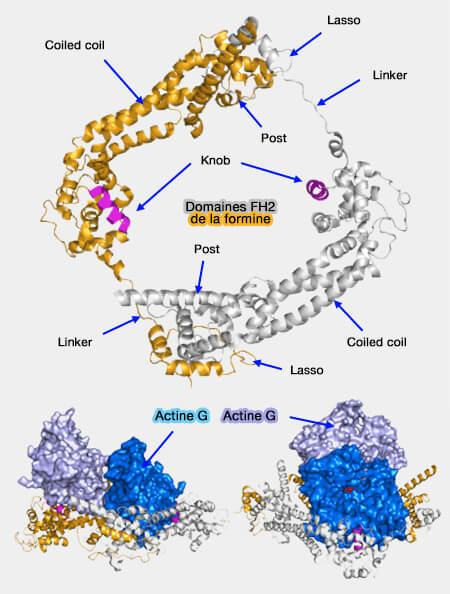
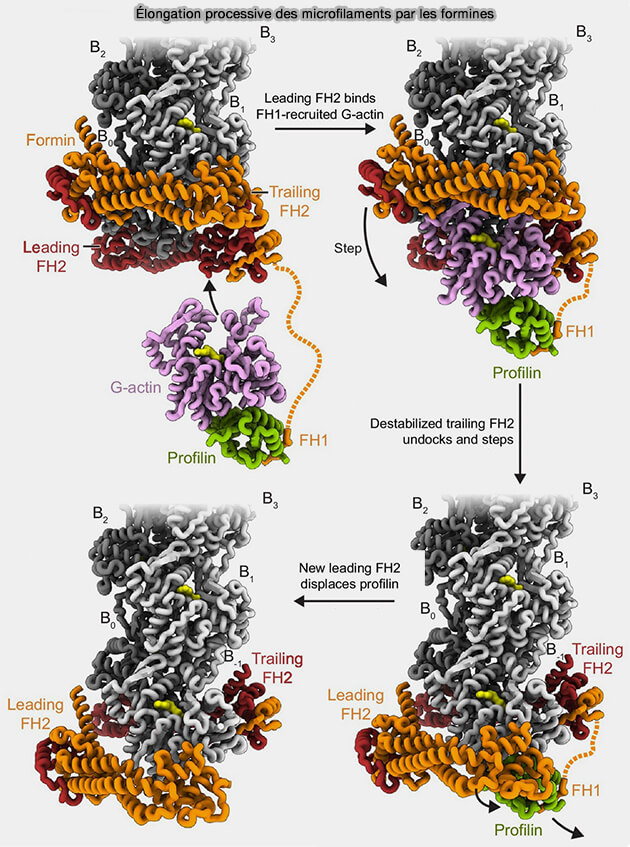

 tableau) :