


Constituants cellulaires
Cytosquelette : microfilaments d'actine
Protéines de réticulation
α-actinine
- Biologie cellulaire et moléculaire
- Constituants de la cellule
- Membrane plasmique
- Noyau
- Cytoplasme
- Hyaloplasme/cytosol
- Structure immergées dans le hyaloplasme
- Cytosquelette
- Vue d'ensemble et rôles
- microfilaments d'actine
- Structure de l'actine
- Polymérisation de l'actine
- Protéines associées à l'actine (Actin-Binding Proteins, ABP)
- Protéines de séquestration
- Protéines de nucléation
- Protéines d’élongation
- Protéines de coiffage
- Protéines de sectionnement et de dépolymérisation
- Protéines de stabilisation
- Protéines de réticulation
- Protéines motrices (myosines)
- Protéines assurant la liaison entre les microfilaments d'actine et la membrane plasmique
- Filaments intermédiaires
- Microtubules
- Proteasome
- Cytosquelette
- Morphoplasme : organites
- Matrice extracellulaire
- Reproduction cellulaire
- Biochimie
- Transport membranaire
- Moteurs moléculaires
- Voies de signalisation

Les α-actinines réticulent et ancrent les microfilaments d'actine et participent à l'organisation de nombreuses structures contractiles et adhésives.
L'α-actinine est une protéine dimérique de réticulation qui organise les microfilaments d'actine en faisceaux relativement espacés.
Isoformes de l'α-actinine
Les mammifères possèdent quatre isoformes d'α-actinine, ACTN1, ACTN2, ACTN3 et ACTN4 (Structural and functional insights into α-actinin isoforms and their implications in cardiovascular disease 2025).
1. Les α-actinines 1 et 4 (ACTN1 et ACTN4), dites non musculaires, sont largement exprimées et généralement sensibles au Ca2+.
Elles sont notamment associées :
- aux fibres de stress,
- aux adhérences cellulaires, où leurs distributions et leurs fonctions sont partiellement distinctes.
Remarque : la dénomination d'α-actinines " non musculaires " pour ACTN1 et ACTN4 ne signifie pas qu'elles soient absentes des cellules musculaires.
Certains variants, notamment d'ACTN1, sont exprimés dans le muscle lisse, où l'α-actinine participe à l'organisation des microfilaments d'actine, au niveau des corps denses et des plaques denses.
2. Les α-actinines 2 et 3 (ACTN2 et ACTN3), dites musculaires, sont insensibles au Ca2+.
- ACTN2 est notamment présente dans les lignes Z des muscles squelettiques et cardiaque.
- ACTN3 est principalement exprimée dans les fibres rapides du muscle squelettique.
Structure de l'α-actinine
L'α-actinine, qui appartient à la superfamille de la spectrine qui comprend également la spectrine et la dystrophine qui sont des protéines de liaison du cytosquelette d'actine à la membrane (Cytoskeletal Integrators: The Spectrin Superfamily 2016).

Pour approfondir ce sujet, vous pouvez consulter : The Structure and Regulation of Human Muscle α-Actinin (2014).
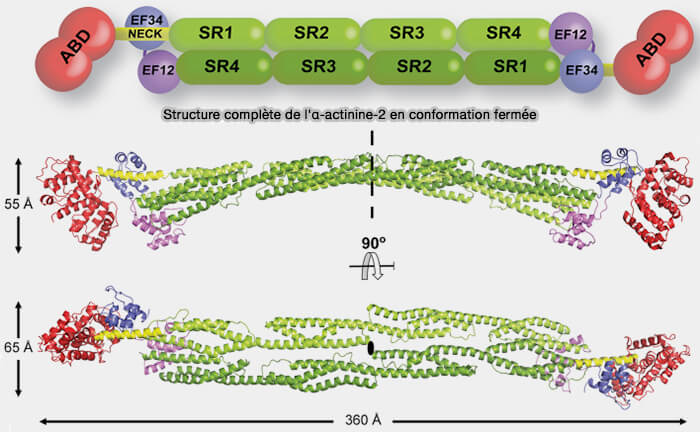
L'α-actinine est formée d'un homodimère antiparallèle dont chaque monomère comporte quatre régions structurales.
1. Le domaine N-terminal de liaison à l'actine (ABD) est formé de deux domaines CH (Calponin homology domain), CH1 et CH2, reliés par une boucle flexible, qui assurent la liaison aux microfilaments d'actine.
La réticulation résulte de la liaison des deux ABD situés aux extrémités opposées de l'homodimère à deux microfilaments distincts ( mécanisme de la réticulation)
(Figure : vetopsy.fr d'après De Almeida Ribeiro Jr et coll)
2. Le cou (neck), région α-hélicoïdale flexible d'environ 24 résidus reliant l'ABD à la tige centrale, permet les changements d'orientation de l'ABD.
Il participe également à la stabilisation du dimère par ses interactions avec le domaine CaM-like du monomère opposé.
3. La tige centrale (rod domain) est constituée de quatre répétitions de spectrine (S ou SR : spectrin repeat), SR1 à SR4, chacune formée de trois hélices α, reliées par des régions inter-SR (Structures of Two Repeats of Spectrin Suggest Models of Flexibility 1999).
Elle subit une torsion de 90° le long de l'axe du dimère (Crystal Structure of the α-Actinin Rod Reveals an Extensive Torsional Twist 2001).
- Dans les α-actinines non musculaires, la tige permet la formation de faisceaux plus ou moins parallèles (entre 60° et 120°) de microfilaments d'actine, espacés de 30 à 40 nm (Novel structures for α-actinin: F-actin interactions and their implications for actin-membrane attachment and tension sensing in the cytoskeleton 2008).
- Dans les α-actinines musculaires, l'angle est constant (d'environ 35°) dans les lignes Z.
4. Le domaine C-terminal de type calmoduline (CaM-like) comporte quatre mains EF (EF hand) organisées en deux paires, EF12 et EF34.
a. Dans les isoformes non musculaires ACTN1 et ACTN4 sensibles au Ca2+, la fixation du Ca2+ aux mains EF régule leur interaction avec les microfilaments d'actine.
b. Dans les isoformes musculaires ACTN2 et ACTN3, des substitutions de résidus impliqués dans la coordination du Ca2+ rendent les mains EF insensibles au Ca2+ (The Structure and Regulation of Human Muscle α-Actinin 2014).
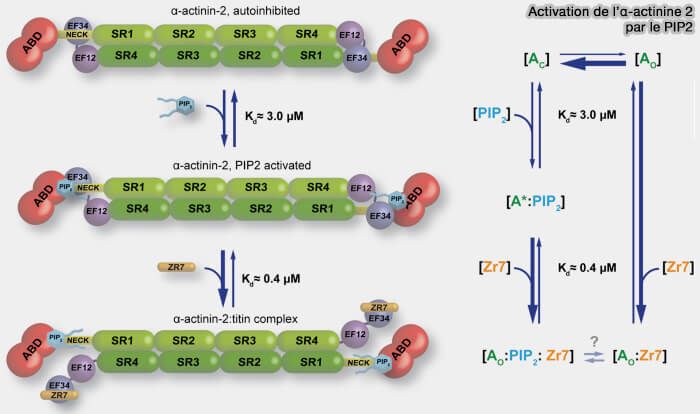
Dans ACTN2, il établit aussi des interactions avec le protomère opposé, notamment entre EF3-4 et le cou, qui contribuent à stabiliser la conformation " fermée " de l'α-actinine.
(Figure : vetopsy.fr d'après De Almeida Ribeiro Jr et coll)
5. L'activité de l'α-actinine est également modulée par les phosphoinositides membranaires, notamment le PI(4,5)P2 ou PIP2 et le PI(3,4,5)P3 ou PIP3, dont la liaison au domaine CH2 modifie sa conformation et régule ses interactions avec les microfilaments d'actine et certains de ses partenaires.
- Dans ACTN2, la liaison du PIP2 favorise le passage de la conformation " fermée " vers la conformation " ouverte " dans laquelle l'interaction entre EF3-4 et le cou est rompue.
La liaison d'EF3-4 à la région Zr-7 de la titine stabilise cette conformation ouverte.
Mécanisme de l'α-actinine
La structure allongée et antiparallèle du dimère d'α-actinine lui permet de relier des microfilaments d'actine tout en maintenant entre eux un espacement relativement important (The Structure and Regulation of Human Muscle α-Actinin 2014).
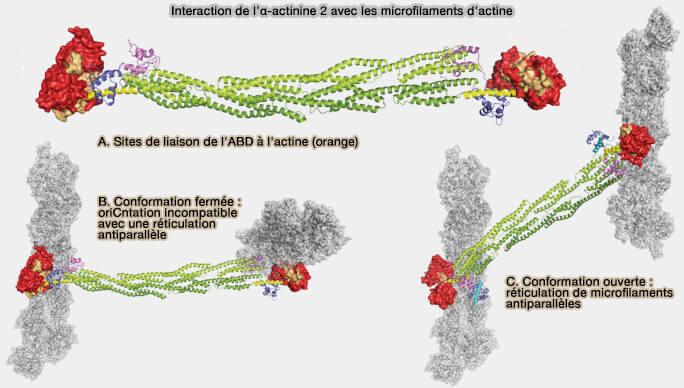
1. Chaque extrémité de l'homodimère porte un domaine ABD capable de se fixer sur un microfilament d'actine différent (figure A)
- Les deux ABD, séparés d'environ 35 nm, permettent ainsi la réticulation de deux microfilaments.
- Cependant, la disposition des ABD observée dans la structure cristallographique de l'α-actinine 2 en conformation " fermée " ne permettrait pas, si le dimère restait rigide, de relier correctement deux microfilaments antiparallèles car leur superposition sur des microfilaments d'actine place ceux-ci dans des orientations presque perpendiculaires (figure B).
(Figure : vetopsy.fr d'après De Almeida Ribeiro Jr et coll)
2. La flexibilité du cou permet la réorientation des ABD.
- Dans la conformation " ouverte ", ceux-ci peuvent ainsi se fixer simultanément à deux microfilaments antiparallèles et assurer leur réticulation (figure C)
- Selon les conditions et la concentration en α-actinine, cette réticulation peut participer à la formation de faisceaux mais également de réseaux de microfilaments.
3. Contrairement aux protéines de réticulation plus compactes, comme les plastines (fimbrines) ou les fascines, l'α-actinine maintient les microfilaments suffisamment espacés pour permettre notamment l'intercalation de filaments de myosine II et la formation de faisceaux contractiles ( actine et myosine).
Rôles de l'α-actinine
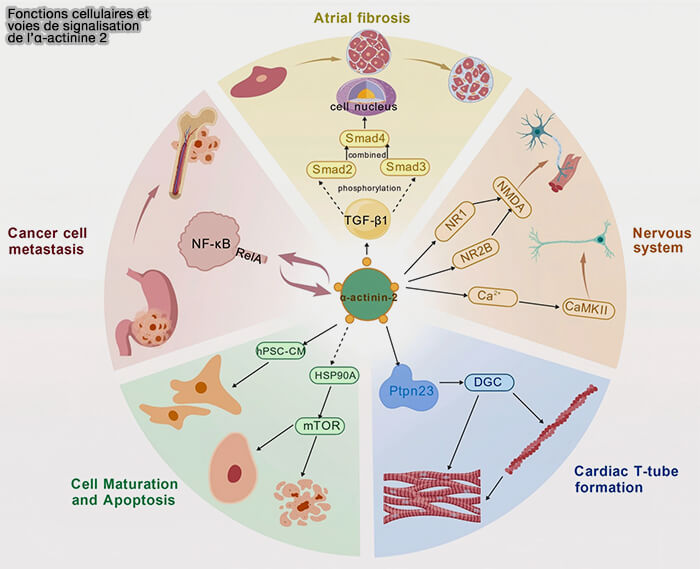
Outre son rôle dans la réticulation des microfilaments d'actine, qui participe à l'organisation des faisceaux et des réseaux d'actine, l'α-actinine intervient dans de nombreux processus cellulaires (Biological properties of α-actinin-2 and its role and mechanisms in disease development 2026).
(Figure : vetopsy.fr d'après Meng et coll)
1. Dans les cellules musculaires striées, les α-actinines musculaires sont des constituants majeurs des lignes Z des sarcomères (The molecular basis for sarcomere organization in vertebrate skeletal muscle 2021).
- ACTN2, présente dans le muscle cardiaque et les différents types de fibres musculaires squelettiques, et ACTN3, principalement exprimée dans les fibres squelettiques rapides, réticulent les microfilaments d'actine des sarcomères adjacents au niveau de la ligne Z et participent ainsi à l'organisation et à la stabilité de l'appareil contractile (Structural and signaling proteins in the Z-disk and their role in cardiomyopathies 2023).
- L'α-actinine 2 interagit également avec de nombreuses protéines de la ligne Z, notamment la titine, et participe à des complexes de signalisation qui couplent l'organisation mécanique du sarcomère à différentes voies de signalisation cellulaire.
Remarque : dans le muscle strié, l'α-actinine est également associée à CapZ au niveau du disque Z, où leurs fonctions de réticulation et de coiffage des microfilaments d'actine contribuent à l'organisation des filaments minces.
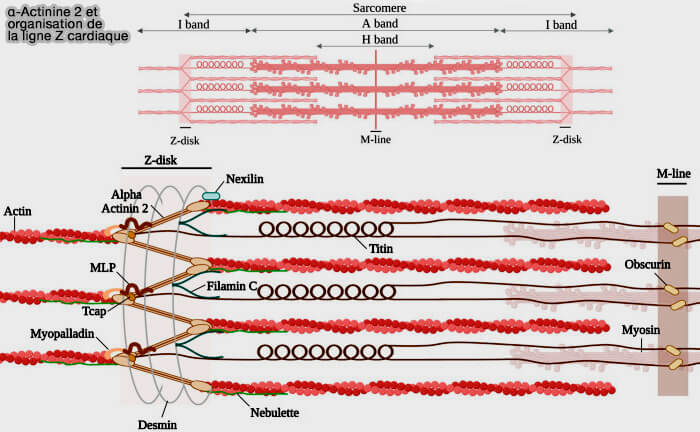
(Figure : vetopsy.fr d'après Noureddine et Gehmlich)
2. L'α-actinine joue un rôle important dans les adhérences focales (cellule/ECM), où elle contribue au couplage mécanique entre les microfilaments d'actine et les complexes d'adhérence associés aux intégrines (From stress fiber to focal adhesion: a role of actin crosslinkers in force transmission 2024).
a. Les adhérences naissantes se forment dans les lamellipodes en association avec le réseau d'actine, indépendamment de l'activité motrice de la myosine II.
- Certaines se désassemblent tandis que d'autres se développent et s'allongent le long d'une matrice de microfilaments organisée par l'α-actinine, qui contribue à leur orientation et fournit une structure sur laquelle s'organisent progressivement les constituants des adhérences.
- La maturation ultérieure implique également la myosine II (Actin and alpha-actinin orchestrate the assembly and maturation of nascent adhesions in a myosin II motor-independent manner 2008).
b. L'α-actinine peut se lier directement à la queue cytoplasmique des sous-unités β de certaines intégrines et participer ainsi au couplage des adhérences focales avec les microfilaments d'actine, selon des mécanismes dépendant du type d'intégrine et faisant notamment intervenir la taline dans l'activation et la maturation des adhérences focales ( activation de la taline).
c. L'α-actinine exerce également une fonction de protéine d'échafaudage en interagissant avec plusieurs protéines des adhérences focales et du cytosquelette, notamment la vinculine, qui participe au couplage des adhérences focales avec les microfilaments d'actine,
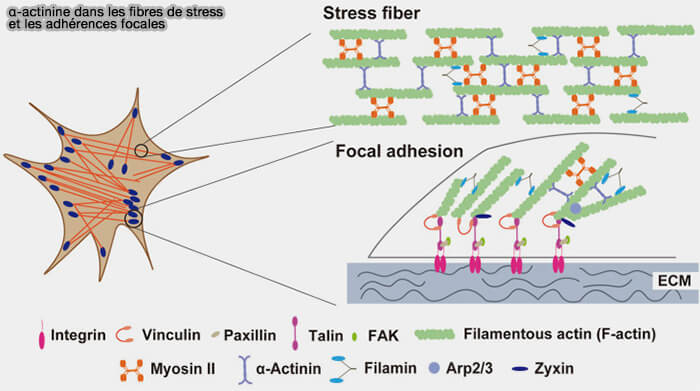
(Figure : vetopsy.fr d'après Katsuta et coll)
3. Dans les fibres de stress soumises à des contraintes mécaniques, l'α-actinine participe à la réparation des régions endommagées (The actin filament bundling protein α-actinin-4 actually suppresses actin stress fibers by permitting actin turnover 2018).
La zyxine et VASP sont recrutées au niveau de ces régions, dans lesquelles de nouveaux microfilaments d'actine sont formés puis réticulés par l'α-actinine afin de restaurer l'organisation de la fibre (Force-activated zyxin assemblies coordinate actin nucleation and crosslinking to orchestrate stress fiber repair 2025).
4. L'α-actinine peut également relier certains autres récepteurs d'adhérence au cytosquelette d'actine.
- L'α-actinine participe notamment à l'organisation des jonctions adhérentes (adherens junctions), où elle contribue au couplage des complexes d'adhérence intercellulaire avec les microfilaments d'actine.
- ACTN1 et ACTN4 interagissent notamment avec le domaine cytoplasmique d'ICAM-1, interaction qui participe à la migration transendothéliale des leucocytes.
5. Dans les synapses excitatrices, ACTN2 est enrichie dans les épines dendritiques et la densité postsynaptique.
- Elle se lie directement aux régions cytoplasmiques des sous-unités GluN1 et GluN2B des récepteurs NMDA et contribue à leur ancrage au cytosquelette d'actine.
- L'activation des récepteurs NMDA modifie les interactions entre ACTN2, GluN2B et CaMKII, participant au remodelage du cytosquelette d'actine et aux modifications morphologiques des épines dendritiques au cours de la plasticité synaptique.
6. Certaines α-actinines exercent également des fonctions nucléaires, particulièrement ACTN4.
ACTN4 peut être importée dans le noyau, où elle intervient notamment comme corégulateur de la transcription, aussi bien coactivateurs que corépresseurs en interagissant avec différents facteurs de transcription et complexes de remodelage de la chromatine.
Retour vers les protéines de réticulation
Biologie cellulaire et moléculaireMembrane plasmiqueNoyauCytoplasmeMitochondriesSystème endomembranaireRéticulum endoplasmiqueAppareil de GolgiEndosomesLysosomesPeroxysomesProtéasomesCytosqueletteMicrofilaments d'actineFilaments intermédiairesMicrotubulesReproduction cellulaireBiochimieTransport membranaire Moteurs moléculairesVoies de signalisation