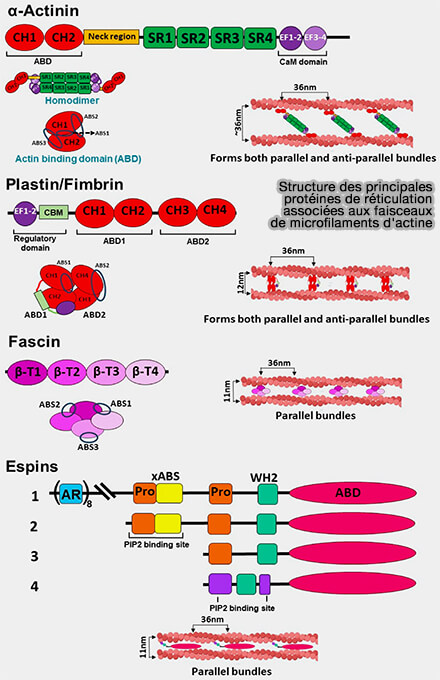
Les plastines, les fascines, la villine et l'espine organisent les microfilaments d'actine en faisceaux parallèles dont les propriétés structurales sont adaptées aux différentes spécialisations cellulaires.
Ces protéines de réticulation, qui diffèrent notamment par leur structure, leur mode de liaison à l'actine et l'espacement qu'elles imposent entre les microfilaments, sont :
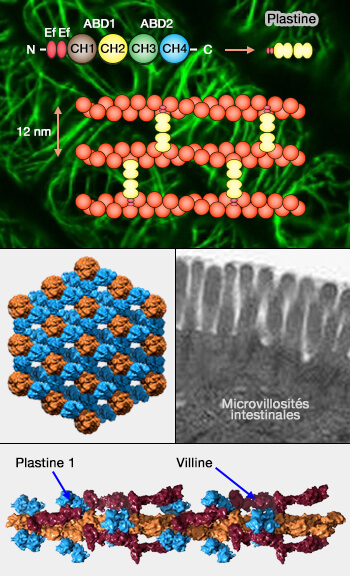
Les plastines (fimbrines) constituent une famille de protéines de réticulation qui organisent les microfilaments d'actine en faisceaux serrés (organisation cellulaire du réseau d'actine).
1. Chez les mammifères, elle comprend trois isoformes dont l'expression tissulaire et les fonctions diffèrent :
Plastines (fimbrines) et actine
(Figure : vetopsy.fr d'après Brown et coll)
a. La plastine 1 (PLS1 ou I-plastine), historiquement appelée fimbrine, est principalement exprimée dans les cellules possédant des structures apicales spécialisées riches en microfilaments d'actine et participe à la formation de faisceaux parallèles de microfilaments de même polarité, notamment dans :
b. La plastine 2 (PLS2 ou L-plastine, codée par LCP1) est principalement exprimée dans les cellules hématopoïétiques où elle organise les microfilaments notamment dans :
les adhérences et autres structures membranaires dynamiques au cours de la migration cellulaire.
c. La plastine 3 (PLS3 ou T-plastine), largement exprimée dans de nombreux tissus, participe à l'organisation des microfilaments notamment dans les filopodes, les adhérences focales (cellule/MEC) et les fibres de stress.
2. Les plastines présentent une organisation particulière parmi les protéines de réticulation puisqu'une même molécule possède deux domaines de liaison à l'actine (ABD1 et ABD2), lui permettant de relier directement deux microfilaments.
Le domaine N-terminal constitue un domaine régulateur contenant deux motifs EF-hand capables de lier le Ca2+ et de participer à la régulation de l'activité de réticulation.
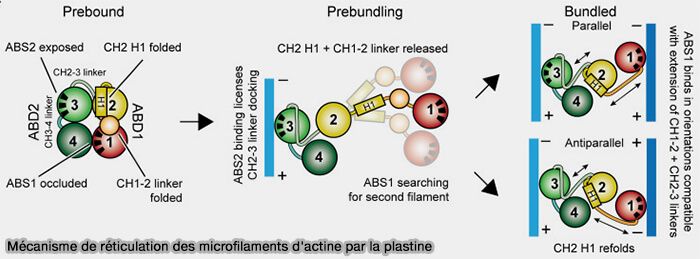
a. Dans la protéine libre, ABD1 et ABD2 interagissent et adoptent une conformation relativement compacte.
La fixation d'ABD2 à un premier microfilament provoque un réarrangement structural qui libère et repositionne ABD1.
ABD1 peut alors se fixer à un microfilament voisin et assurer ainsi la réticulation des deux microfilaments.
Mécanisme de réticulation des microfilaments d'actine par la plastine
(Figure : vetopsy.fr d'après Mei et coll)
b. La faible distance entre les deux sites de liaison impose un rapprochement important des microfilaments et favorise leur organisation en faisceaux serrés (environ 12 nm), généralement parallèles dans les structures cellulaires spécialisées, bien que les plastines puissent également relier des microfilaments antiparallèles (Structural mechanism for bidirectional actin cross-linking by T-plastin 2022).
4. Le Ca2+ régule l'activité de réticulation des plastines par l'intermédiaire des deux motifs EF-hand de leur domaine N-terminal.
La fixation du Ca2+ induit des changements conformationnels qui modulent l'interaction des domaines ABD avec les microfilaments d'actine et diminuent, à des degrés variables selon l'isoforme, leur activité de réticulation.
Les plastines sont également régulées par phosphorylation, particulièrement bien caractérisée pour la plastine 2 (L-plastine), dont la phosphorylation N-terminale, notamment sur la Ser5, augmente lors de l'activation de nombreuses cellules immunitaires et module son association avec le cytosquelette d'actine.
1. Chez les mammifères, la famille des fascines comprend trois isoformes dont l'expression tissulaire et les fonctions diffèrent.
La fascine 1 (FSCN1) est largement exprimée, notamment dans les cellules mésenchymateuses, neuronales et dendritiques, et constitue la principale isoforme impliquée dans la formation des filopodes.
La fascine 3 (FSCN3) est principalement exprimée dans les testicules et intervient au cours de la spermatogenèse.
Remarque : les fascines ne doivent pas être confondues avec les neurofascines (NFASC), notamment NF186 et NF155, qui sont des molécules d'adhérence cellulaire de la superfamille des immunoglobulines et qui n'appartiennent pas à la famille des fascines.
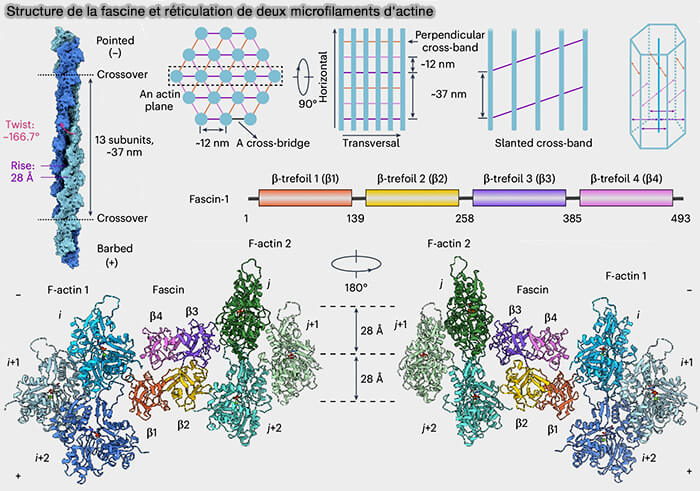
Structure de la fascine et réticulation de deux microfilaments d'actine
(Figure : vetopsy.fr d'après Gong et coll)
a. Chaque domaine β-trèfle est constitué de 12 brins β (beta strands), organisés en trois sous-unités structurales similaires qui lui confèrent une pseudo-symétrie ternaire caractéristique.
Les quatre domaines forment une structure compacte organisée en deux lobes, constitués respectivement des domaines β1-β2 et β3-β4, qui confèrent à la molécule une forme globale incurvée.
Les interactions entre les différents domaines stabilisent cette organisation tout en conservant une certaine flexibilité conformationnelle nécessaire à la réticulation des microfilaments.
b. La fascine possède deux sites distincts de liaison à l'actine (ABS1 et ABS2, actin-binding sites), situés sur des faces opposées de la molécule.
Les données structurales récentes montrent qu'ABS1 est formé par les domaines β1 et β4, tandis qu'ABS2 est formé par les domaines β2 et β3.
Chaque site se fixe à un microfilament différent, permettant à une seule molécule de fascine d'assurer directement leur réticulation.
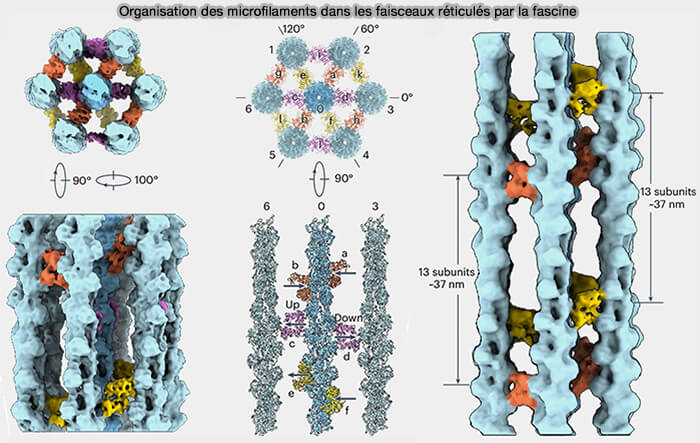
Organisation des microfilaments dans les faisceaux réticulés par la fascine
(Figure : vetopsy.fr d'après Gong et coll)
3. La structure globulaire de la fascine rapproche fortement les microfilaments et favorise leur organisation en faisceaux parallèles très serrés, espacés d'environ 8 à 9 nm, caractéristiques notamment des filopodes.
Remarque : la fascine peut également coopérer avec la cofiline dans le désassemblage des faisceaux de microfilaments des filopodes.
4. Contrairement à plusieurs autres protéines de réticulation, l'activité de la fascine est indépendante du Ca2+, mais est notamment régulée par phosphorylation.
La PKCα (Protein Kinase C α) phosphoryle la Ser39, située dans la région du site de liaison à l'actine ABS1, ce qui inhibe la liaison de la fascine aux microfilaments d'actine et diminue leur réticulation.
La fascine participe également à la coordination entre les faisceaux d'actine des filopodes et les adhérences focales (cellule/MEC) dépendantes des intégrines, contribuant ainsi au couplage fonctionnel entre le cytosquelette d'actine et la matrice extracellulaire (ECM).
Villine
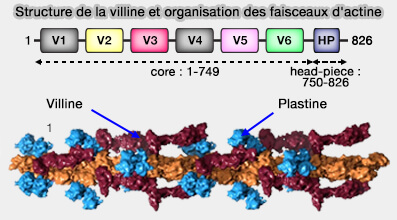
La villine est une protéine de réticulation principalement exprimée dans les cellules épithéliales possédant une bordure en brosse, où elle participe avec la plastine 1 à l'organisation des faisceaux parallèles de microfilaments d'actine des microvillosités.
Villine et réseau d'actine
(Figure : vetopsy.fr d'après Brown et coll) Les six domaines homologues de type gelsoline, V1 à V6, dont certains se lient à l'actine, constituent la majorité de la protéine et présentent environ 45 % d'identité de séquence avec ceux de la gelsoline ( structure de la gelsoline).
Le petit domaine C-terminal appelé Headpiece (HP), d'environ 76 acides aminés, absent de la gelsoline, contient un site de liaison aux microfilaments d'actine par l'intermédiaire d'un motif basique KKE qui joue un rôle majeur dans l'activité de réticulation propre à la villine.
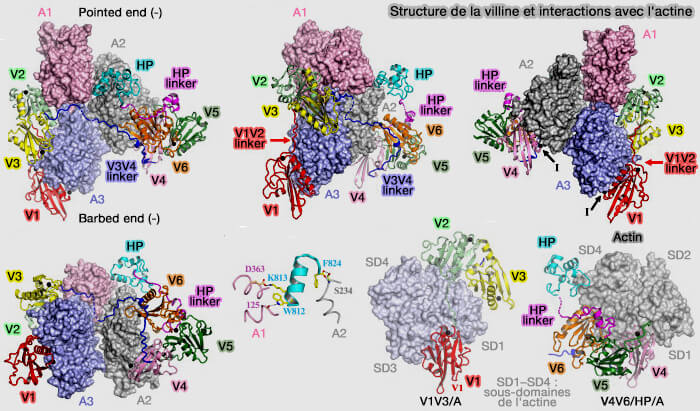
2. Grâce à ses différents sites de liaison à l'actine, la villine réticule les microfilaments en faisceaux dont l'organisation est moins régulière que celle des faisceaux fortement ordonnés formés par les plastines, en raison de la géométrie différente de ses sites de liaison et de son mode de réticulation.
Le headpiece se lie à un microfilament tandis que des régions formées notamment par les domaines V1-V2, établissent des contacts avec un microfilament voisin.
Le headpiece est relié au domaine V6 par une région flexible d'environ 40 acides aminés qui lui permet de s'adapter à différentes orientations relatives des microfilaments.
Interactions de la villine avec l'actine
(Figure : vetopsy.fr d'après Robinson et coll)
Remarque : Outre son activité de réticulation, la villine possède plusieurs autres activités sur l'actine et peut notamment participer à la nucléation, au coiffage et au sectionnement des microfilaments, activités dont l'expression dépend notamment de la concentration en Ca2+.
Le gène ESPN produit plusieurs isoformes d'espine, regroupées principalement en quatre classes de taille différentes avec plusieurs variantes au sein de certaines de ces classes :
espine 1 (espin 1), la plus grande, ≈ 110 kDa,
espine 2 (espin 2), ≈ 60 kDa,
espine 3 (espin 3), ≈ 30–35 kDa,
espine 4 (espin 4), ≈ 25–30 kDa qui diffèrent principalement par leur région N-terminale.
1. Leur région C-terminale est composée de deux domaines.
a. Un actin-bundling module (ABM) d'environ 116 aa comportant deux sites de liaison aux microfilaments d'actine,
Ces sites permettent à une même molécule d'espine de relier deux microfilaments voisins et de les organiser en faisceaux parallèles serrés.
Cette activité de réticulation est indépendante du Ca2+ et permet la formation de faisceaux particulièrement stables,
b. Un domaine WH2 (WASP Homology 2) qui lie les monomères d'actine G
confère à l'espine des activités sur la polymérisation des microfilaments d'actine distinctes de son activité de réticulation ( protéines à domaines WH2 multiples).
L'espine peut favoriser la nucléation de nouveaux microfilaments ainsi que leur élongation à l'extrémité barbée (+) ( protéines d'élongation).
Elle peut également protéger cette extrémité contre les protéines de coiffage, maintenant ainsi sa disponibilité pour l'élongation et contribuant à la croissance des faisceaux de microfilaments.
2. Leur région N-terminale présente des extensions variables selon les isoformes :
un site supplémentaire de liaison aux microfilaments d'actine (xAB ou extra actin-binding site) dans les grandes isoformes, qui renforce leur interaction avec l'espine,
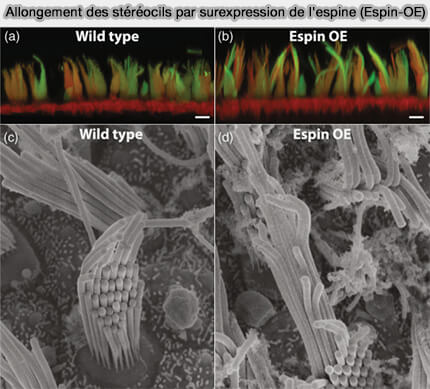
Allongement des stéréocils par surexpression
de l'espine (Espin-OE)
(Figure : vetopsy.fr d'après Zheng et coll)
L'interaction des répétitions ankyrine avec la myosine III peut lever cette autoinhibition et permettre au site xAB de se lier aux microfilaments d'actine, assurant ainsi une régulation locale de l'activité de l'espine dans les stéréocils.
Elle contribue notamment au contrôle de la longueur et du diamètre des stéréocils, dont le faisceau central de microfilaments doit être maintenu pendant toute la vie de la cellule.
Son domaine WH2 et ses interactions avec les microfilaments d'actine lui confèrent également une activité anti-coiffage qui favorise l'élongation des microfilaments et contribue à la croissance des faisceaux.


 organisation cellulaire du réseau d'actine).