


Constituants cellulaires
Cytosquelette : microfilaments d'actine
Protéines associées à l'actine (Actin-Binding Proteins, ou ABP)
- Biologie cellulaire et moléculaire
- Constituants de la cellule
- Membrane plasmique
- Noyau
- Cytoplasme
- Hyaloplasme/cytosol
- Structure immergées dans le hyaloplasme
- Cytosquelette
- Vue d'ensemble et rôles
- microfilaments d'actine
- Structure de l'actine
- Polymérisation de l'actine
- Protéines associées à l'actine (Actin-Binding Proteins, ABP)
- Protéines de séquestration
- Protéines de nucléation
- Protéines d’élongation
- Protéines de coiffage
- Protéines de sectionnement et de dépolymérisation
- Protéines de stabilisation
- Protéines de réticulation
- Protéines motrices (myosines)
- Protéines assurant la liaison entre les microfilaments d'actine et la membrane plasmique
- Filaments intermédiaires
- Microtubules
- Proteasome
- Cytosquelette
- Morphoplasme : organites
- Matrice extracellulaire
- Reproduction cellulaire
- Biochimie
- Transport membranaire
- Moteurs moléculaires
- Voies de signalisation

Les protéines associées à l'actine (ABP) contrôlent la dynamique, l'organisation et les fonctions des microfilaments d'actine en régulant leur assemblage, leur remodelage et leurs interactions avec les autres constituants cellulaires.
Les microfilaments d'actine assurent de nombreuses fonctions cellulaires grâce à leur capacité à s'assembler, se désassembler et se réorganiser rapidement.
Ces propriétés reposent sur les caractéristiques intrinsèques de l'actine.
Les protéines associées à l'actine (ABP) contrôlent ces processus grâce à des domaines spécialisés qui leur permettent d'interagir avec l'actine et avec d'autres constituants cellulaires.
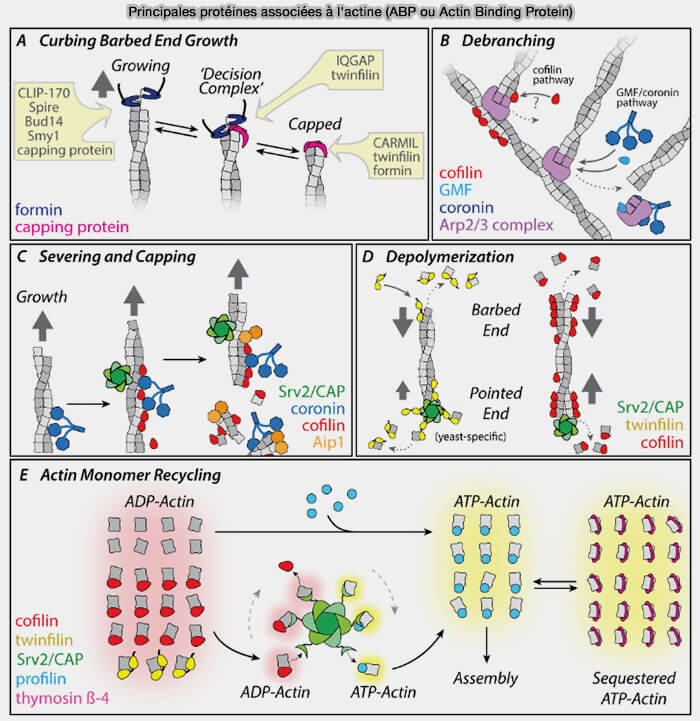
(Figure : vetopsy.fr d'après Goode et coll)
Sites et domaines de liaison à l'actine
Les ABP (Actin Binding Protein) possèdent un ou plusieurs domaines de liaison à l'actine qui leur permettent de se fixer :
- aux monomères d'actine G,
- aux microfilaments d'actine,
- ou aux deux.
Remarque importante : le terme ABD (Actin-Binding Domain) peut être utilisé dans la littérature au sens général pour désigner différents domaines capables de se lier à l'actine.
- Dans vetopsy.fr, afin d'éviter toute ambiguïté, l'abréviation ABD est réservée au domaine constitué de deux domaines CH disposés en tandem, CH1–CH2.
- Les autres structures assurant la liaison à l'actine sont désignées par leur nom propre (WH2, FH2, ADF-H…) ou plus généralement comme domaines ou sites de liaison à l'actine.
1. Les domaines de liaison à l'actine présentent une grande diversité structurale.

actuelles à l’actine
(Figure : vetopsy.fr d'après Iwamoto et coll)
a. Les domaines ABD (Actin-Binding Domain), constitués de deux domaines CH (Calponin Homology), sont présents dans de nombreuses protéines associées au cytosquelette d'actine.
b. D'autres domaines de liaison à l'actine comprennent notamment :
- les domaines WH2 (Wasp-Homology-2), présents notamment dans les protéines WASP, WAVE et les protéines à domaines WH2 multiples (Tandem-monomer-binding nucleators),
- les domaines FH2 (Formin-Homology-2), caractéristiques des formines,
- les domaines ADF-H (Actin Depolymerizing Factor Homology), présents notamment dans la cofiline, l'ADF, la twinfiline…
- les domaines de type gelsoline, présents dans la gelsoline et dans les membres de sa famille, la villine, l'advilline et CapG,
- les domaines moteurs des myosines, qui assurent la liaison à l'actine et la production de force mécanique.
c. Certaines protéines possèdent des modules ou des sites spécialisés de liaison à l'actine qui ne correspondent pas à des domaines structuraux individualisés :
- Les sites de liaison à l'actine (ABS, Actin-Binding Sites) des fascines, répartis à la surface de la molécule,
- le module de regroupement de l'actine (ABM, Actin-Bundling Module) de l'espine, impliqué dans la formation des faisceaux parallèles de microfilaments d'actine,
- les sites GAB (G-actin-Binding Site) et FAB (F-actin-Binding Site) du domaine EVH2 des protéines Ena/VASP, qui assurent respectivement la liaison à l'actine G et à l'actine F.
2. Bien que ces domaines présentent des structures très différentes, ils interagissent avec des régions spécifiques de l'actine et assurent des fonctions complémentaires.
- De nombreuses ABP reconnaissent le sillon hydrophobe situé entre les sous-domaines 1 et 3 de l'actine, souvent par l'intermédiaire d'une hélice α amphiphile qui établit des interactions largement conservées (Actin Structure and Function 2011).
- Cependant, les interfaces de liaison sont très diverses, notamment pour les protéines reconnaissant les microfilaments d'actine, et peuvent s'étendre sur plusieurs sous-domaines ou plusieurs sous-unités du filament.

Pour une synthèse générale, on pourra consulter la revue classique Actin Binding Proteins : Regulation of Cytoskeletal Microfilaments (2003), complétée par des revues plus récentes consacrées aux protéines associées à l'actine et à leur diversité structurale et fonctionnelle (Actin-Associated Proteins and Small Molecules Targeting the Actin Cytoskeleton 2022).
Une liste alphabétique de nombreuses protéines associées à l'actine est également disponible dans l'article Actin Binding Proteins de Wikipedia.
Diversité des ABP
Plusieurs centaines d'ABP ont été identifiées chez les eucaryotes.
- Leur expression varie selon les tissus, le type cellulaire et l'état physiologique de la cellule.
- De nombreuses ABP exercent plusieurs fonctions simultanément et appartiennent ainsi à plusieurs catégories, tout en participant à l'organisation dynamique du cytosquelette.
1. Les ABP peuvent être classées en plusieurs grandes familles fonctionnelles :
- des protéines de séquestration qui séquestrent les monomères d'actine G et régulent leur disponibilité pour la polymérisation (thymosine β4, profiline, CAP1 et CAP2 (Cyclase-associated proteins), twinfiline, DNase I…),
- des protéines de nucléation qui initient la formation de nouveaux microfilaments (formines, complexe Arp2/3, protéines à domaines WH2 multiples ou tandem-monomer-binding nucleators…),
- des protéines d’élongation qui favorisent l’ajout de monomères d’actine G à l’extrémité (+) et accompagnent la croissance du microfilament (formines, Ena/VASP, …),
- des protéines de coiffage qui se fixent aux extrémités (+) ou (-) et contrôlent les échanges de monomères (CapZ, gelsoline, twinfiline, tropomoduline…),
- des protéines de sectionnement et de dépolymérisation qui fragmentent les microfilaments et favorisent leur renouvellement (cofiline, gelsoline…),
- des protéines de stabilisation qui limitent la dépolymérisation et stabilisent certains réseaux d'actine (tropomyosines, cortactine…),
- des protéines de réticulation qui relient plusieurs microfilaments afin de former des faisceaux ou des réseaux tridimensionnels (plastines (fimbrines), fascines, villine, espine, α-actinine, filamine…),
- des protéines motrices, les myosines, qui utilisent les microfilaments d'actine comme rails moléculaires pour produire des forces et des mouvements cellulaires,
- des protéines assurant la liaison entre les microfilaments d'actine et la membrane plasmique, comme les protéines ERM (Ezrine, Radixine, Moésine), les spectrines et la dystrophine.
L'ankyrine participe également à ces complexes d'ancrage par son interaction avec les spectrines et diverses protéines membranaires, mais sans se lier directement aux microfilaments d'actine.
Remarque : certaines ABP sont dites multifonctionnelles car elles participent à plusieurs mécanismes.
Par exemple les formines, classées dans les protéines de nucléation, peuvent aussi participer au coiffage de l'extrémité barbée (+) et à l'élongation.
2. Les protéines associées à l'actine ne contrôlent pas uniquement la dynamique des microfilaments.
Elles assurent également les interactions entre le cytosquelette d'actine et de nombreuses structures cellulaires, contribuant ainsi à l'organisation et au fonctionnement de la cellule.
Elles participent notamment aux interactions avec :
- la membrane plasmique et le cortex cellulaire, participant aux adhérences cellulaires, à l'endocytose et à l'exocytose au maintien de la forme cellulaire,
- le système endomembranaire, i.e. réticulum endoplasmique (RE), l'appareil de Golgi, les endosomes et les lysosomes, pour participer au transport intracellulaire, au trafic vésiculaire et au positionnement des organites,
- le noyau, pour intervenir dans l'organisation de l'enveloppe nucléaire et de la chromatine ainsi que dans la régulation de l'expression génique,
- les autres réseaux du cytosquelette, pour coordonner l'organisation et la dynamique des microtubules et des filaments intermédiaires, grâce à diverses protéines de liaison, parmi lesquelles figurent certaines MAP (Microtubule-Associated Proteins) et IFAP (Intermediate Filament Associated Protein),
- les principaux organites cellulaires, notamment les mitochondries, les peroxysomes et les gouttelettes lipidiques (LD), pour contrôler leur positionnement, leur transport et leurs interactions avec le cytosquelette,
- les jonctions d'adhérence (cellule/cellule) et les adhérences focales (cellule/MEC), pour transmettre les forces mécaniques et participer à l'adhérence, à la migration et à la mécanotransduction.
Retour aux microfilaments d'actine
Biologie cellulaire et moléculaireMembrane plasmiqueNoyauCytoplasmeMitochondriesSystème endomembranaireRéticulum endoplasmiqueAppareil de GolgiEndosomesLysosomesPeroxysomesProtéasomesCytosqueletteMicrofilaments d'actineFilaments intermédiairesMicrotubulesReproduction cellulaireBiochimieTransport membranaire Moteurs moléculairesVoies de signalisation