


Constituants cellulaires
Cytosquelette : microfilaments d'actine
Protéines de liaison avec la membrane
Spectrines
- Biologie cellulaire et moléculaire
- Constituants de la cellule
- Membrane plasmique
- Noyau
- Cytoplasme
- Hyaloplasme/cytosol
- Structure immergées dans le hyaloplasme
- Cytosquelette
- Vue d'ensemble et rôles
- microfilaments d'actine
- Structure de l'actine
- Polymérisation de l'actine
- Protéines associées à l'actine (Actin-Binding Proteins, ABP)
- Protéines de séquestration
- Protéines de nucléation
- Protéines d’élongation
- Protéines de coiffage
- Protéines de sectionnement et de dépolymérisation
- Protéines de stabilisation
- Protéines de réticulation
- Protéines motrices (myosines)
- Protéines assurant la liaison entre les microfilaments d'actine et la membrane plasmique
- Filaments intermédiaires
- Microtubules
- Proteasome
- Cytosquelette
- Morphoplasme : organites
- Matrice extracellulaire
- Reproduction cellulaire
- Biochimie
- Transport membranaire
- Moteurs moléculaires
- Voies de signalisation

Les spectrines sont des protéines du cytosquelette membranaire qui forment, avec les microfilaments d'actine, un réseau sous-membranaire assurant la résistance mécanique, la déformabilité et l'organisation de la membrane plasmique.
Les spectrines participent à l'organisation du cytosquelette membranaire en formant un réseau sous-membranaire associé à l'actine et relié à la membrane plasmique.
Les autres protéines de liaison membranaire des microfilaments d'actine sont :
- les protéines ERM (Ezrine, Radixine, Moésine)
- la dystrophine,
- l'ankyrine, qui participe indirectement à cet ancrage en reliant notamment les spectrines à diverses protéines membranaires.
Remarque : initialement caractérisées dans les érythrocytes, où elles contribuent à la résistance mécanique et à la déformabilité de la membrane, les spectrines sont également considérées comme des protéines de réticulation.
Structure de la spectrine
La spectrine appartient à la superfamille des protéines à répétitions spectrine, qui comprend notamment l'α-actinine, la dystrophine et l'utrophine (Cytoskeletal Integrators: The Spectrin Superfamily 2016).
Chez les mammifères, on compte sept isoformes dont :
- deux principalement exprimés dans les érythrocytes, SPTA1 et SPTB,
- cinq principalement dans les tissus non érythroïdes, SPTAN1, SPTBN1, SPTBN2, SPTBN4 et SPTBN5.
Remarque : son nom provient de sa découverte dans les érythrocytes car, après élimination expérimentale de la majorité des constituants cellulaires, persistait un réseau sous-membranaire formant le " fantôme " de l'érythrocyte, dans lequel la spectrine fut identifiée comme composant majeur.
Sous-unités α et β
1. Les sous-unités α et β présentent une grande diversité, mais sont toutes constituées de répétitions de spectrine (SR : spectrin repeat).
Outre les répétitions de spectrine, les sous-unités α et β comportent des domaines fonctionnels spécifiques.
- Les sous-unités α possèdent à leur extrémité C-terminale deux mains EF (EF hand). susceptibles de lier le calcium.
- Les sous-unités β possèdent à leur extrémité N-terminale un domaine ABD formé de deux domaines CH assurant la liaison aux microfilaments d'actine.

(Figure : vetopsy.fr)
2. Les répétitions de spectrine, une vingtaine pour l'α et une quinzaine à une vintaine pour la β selon les isoformes, sont composées d'environ 106 acides aminés organisés en trois hélices α (A, B et C) reliées par de courtes boucles (AB et BC), formant un domaine coiled-coil (Solution Structure of the Spectrin Repeat: a Left-handed Antiparallel Triple-helical Coiled-coil 1997).
Les répétitions de spectrine (SR : spectrin repeat) forment une tige dont la longueur et la flexibilité dépendent du nombre de répétitions.
a. Les hélices A et B sont antiparallèles, tandis que l'hélice C se loge entre elles pour former une structure en triple hélice α (The spectrin repeat: a structural platform for cytoskeletal protein assemblies 2002).
Les unités répétitives sont reliées les unes aux autres par l'association de l'hélice C d'une répétition avec l'hélice A de la répétition suivante, formant une tige flexible et résistante.
b. La boucle BC de la répétition S9 de l'α-spectrine contient un domaine SH3, capable d'interagir avec des protéines partenaires avec des domaines riches en proline (PRD) pour participer à l'organisation de complexes multiprotéiques du cytosquelette.

(Figure : vetopsy.fr d'après Sira Sriswasdi)
Assemblages des spectrines
Les spectrines peuvent adopter différentes conformations et se présenter sous forme d'hétérodimères ouverts ou fermés ainsi que sous forme de tétramères, permettant une régulation fine de leurs propriétés mécaniques et de leurs interactions (Probing large conformational rearrangements in wild-type and mutant spectrin using structural mass spectrometry 2013).

(Figure : vetopsy.fr d'après Brown)
1. Les hétérodimères αβ se forment par l'association antiparallèle d'une sous-unité α et d'une sous-unité β.
- Deux répétitions de spectrine de la sous-unité α (SR19 et SR20) interagissent avec deux répétitions de la sous-unité β (SR1 et SR2) pour former le site de dimérisation.
- Huit résidus de ces répétitions, aussi bien dans la sous-unité α que dans la sous-unité β, sont indispensables à cette interaction.
2. Les tétramères résultent de l'association de deux hétérodimères αβ par interaction entre l'extrémité N-terminale d'une sous-unité α et l'extrémité C-terminale d'une sous-unité β appartenant à l'hétérodimère adjacent au niveau du site de tétramérisation.
a. Les tétramères de spectrine s'associent à de courts microfilaments d'actine d'environ 14 sous-unités situés à chacune de leurs extrémités pour former un réseau sous-membranaire assurant le soutien mécanique de la membrane plasmique.
b. Dans les érythrocytes, ce maillage adopte principalement une organisation hexagonale et contribue à la résistance mécanique ainsi qu'à la déformabilité de la cellule.
Bien que les tétramères de spectrine mesurent environ 200 à 240 nm lorsqu'ils sont totalement déployés in vitro, leur longueur est généralement estimée entre 65 et 80 nm dans les cellules, où ils adoptent une conformation plus compacte.
3. L'assemblage et l'organisation du réseau de spectrine sont également modulés par de nombreux partenaires moléculaires qui interagissent avec les sous-unités α et β et contribuent à leurs fonctions cellulaires (Étude des fonctions de la spectrine α non érythroïde 2009).
Ancrage à la membrane plasmique

(Figure : vetopsy.fr)
L'ancrage du réseau spectrine–actine à la membrane plasmique repose sur l'intervention de plusieurs protéines, notamment les ankyrines, la protéine 4.1, la glycophorine-C et la protéine p55.
Fixation à l'ankyrine
L'ankyrine est une protéine adaptatrice qui relie les spectrines à diverses protéines membranaires.

L'ankyrine est étudiée dans un chapitre spécifique.
1. L'ankyrine est composée de quatre domaines ( structure de l'ankyrine).
Son domaine central se lie à la spectrine via des interactions électrostatiques et hydrophobiques (The role of hydrophobic interactions in ankyrin–spectrin complex formation 2010 et Structural basis for spectrin recognition by ankyrin 2010).
Le petit sous-domaine appelé ZU5A-ANK, du nom de son homologie avec ZO-1, une protéine associée aux jonctions serrées (zona occludens), et Unc5, le récepteur de la nétrine, est seul responsable de la reconnaissance spécifique des répétitions 14 et 15 de la sous-unité β de la spectrine.

(Figure : vetopsy.fr)
2. L'ankyrine se lie également à la protéine transmembranaire Band 3 (Band 3 anion transport protein, Anion Exchanger 1 : AE1 ou SLC4A1).
Band 3, étudiée dans un chapitre spécifique, est un transporteur d'anions phylogénétiquement conservé qui assure l'échange d'un ion chlorure (Cl-) contre un ion bicarbonate (HCO3−) à travers la membrane plasmique.
a. Cette interaction assure le recrutement de la spectrine au voisinage de la membrane plasmique ( liaison Band 3-ankyrine).
Le complexe spectrine-ankyrine-Band 3 constitue ainsi l'un des principaux systèmes d'ancrage du cytosquelette membranaire à la membrane plasmique.
b. Le complexe spectrine-ankyrine-Band 3 est également associé à la protéine 4.2, qui contribue à sa stabilité ( liaison Band 3-protéine 4.2).
Fixation à la protéine 4.1
La spectrine peut également se lier à la protéine 4.1 (Band 4.1), qui interagit à la fois avec les microfilaments d'actine et avec la glycophorine C, une protéine transmembranaire, et la protéine p55.
Le complexe spectrine-protéine 4.1-glycophorine C-p55 constitue un second système d'ancrage du réseau spectrine-actine à la membrane plasmique.
Structure de la protéine 4.1
1. La protéine 4.1 (Band 4.1, EPB41 ou protéine de Beatty) est un composant de la membrane plasmique qui comprend plusieurs isoformes :
- 4.1R, R pour Red blood cell, essentiel dans la stabilisation des érythrocytes (Insights into the Function of the Unstructured N-Terminal Domain of Proteins 4.1R and 4.1G in Erythropoiesis 2011).
- 4.1N, N pour Neuron,
- 4.1B, B pour Brain,
- 4.1G, pour General, ubiquitaire.

(Figure : vetopsy.fr)
Remarque : les isoformes 4.1R et 4.1G sont notamment exprimées dans les érythrocytes immatures.
2. La protéine 4.1 comprend plusieurs régions historiquement définies par leur masse moléculaire apparente (Regulation of Protein 4.1R Interactions with Membrane Proteins by Ca2+ and Calmodulin 2006) :
- un domaine FERM N-terminal (ancien domaine 30kDa) qui entre en contact avec de nombreuses protéines, notamment la glycophorine C, p55, le récepteur membranaire CD44, la calmoduline et la tubuline,
- un domaine central constitué de régions de 16 et 10 kDa, la région 10 kDa assurant la liaison au complexe spectrine–actine (SABD : Spectrin-Actin Binding Domain),
- un domaine C-terminal (22-24 kDa) capable d'interagir avec plusieurs partenaires, notamment un domaine C-terminal (22-24 kDa), ZO-2, protéine associée aux jonctions serrées (zona occludens), certaines immunophilines et NuMA.
Complexe d'ancrage spectrine-protéine 4.1-glycophorine C-p55
La protéine 4.1 interagit notamment avec la glycophorine C et la protéine p55 pour former un complexe ternaire participant à l'ancrage du réseau spectrine-actine à la membrane plasmique (Identification of the Protein 4.1 Binding Interface on Glycophorin C and p55, a Homologue of the Drosophila discs-large Tumor Suppressor Protein 1995 et Insights into the Function of the Unstructured N-Terminal Domain of Proteins 4.1R and 4.1G in Erythropoiesis 2011).

(Figure : vetopsy.fr)
1. La glycophorine C est une protéine transmembranaire dont le domaine cytoplasmique (47 résidus), est appelé aussi RHK ou GNP (Glycophorine, Neurexin, Paranodine).
Ce domaine contient :
- le site de liaison avec la protéine 4.1,
- le site de liaison avec la p55 (EYP1) dans le domaine C-terminal.
2. La protéine p55 (MPP1 : Membrane Palmitoylated Protein 1), protéine palmitoylée de la famille de la guanylate kinase associée à la membrane (MAGUK : membrane-associated guanylate kinase) joue un rôle de protéine d'échafaudage (scaffold protein).
Elle comprend plusieurs domaines impliqués dans les interactions protéine-protéine :
- un domaine PDZ qui reconnaît de nombreux motifs courts à 5 aa à la fin du domaine C-terminal de nombreuses protéines et qui peut être phosphorylé sur les résidus sérine, thréonine et tyrosine,
- un domaine SH3 de 60 aa,
- un domaine HOOK,
- un domaine GUK (GUanylate Kinase).

Des mutations de ces différentes protéines provoquent des anémies sphérocytaires (Hereditary Spherocytosis: Linking Ion Transport Defects to Osmotic Gradient Ektacytometry Profiles - A Review 2026).
Remarque : des interactions avec Band 3 ont également été décrites, suggérant l'existence de connexions entre les complexes jonctionnels et le complexe spectrine-ankyrine-Band 3.
Autres protéines associées
Bien d'autres protéines s'ajoutent à ces deux complexes pour les stabiliser et en réguler le fonctionnement :
- l'adducine, qui relie le complexe spectrine–actine à Band 3, stabilise les interactions entre les microfilaments d'actine, les spectrines et la membrane plasmique,
- la calmoduline, qui intervient dans la régulation calcium-dépendante de nombreuses interactions protéiques du cytosquelette membranaire,
- les protéines R et RhAG, qui appartiennent au complexe Rh et contribuent à l'organisation et à la stabilité de la membrane érythrocytaire (Anatomy of the red cell membrane skeleton: unanswered questions 2016).
- Associé au complexe spectrine-ankyrine-Band 3 par l'intermédiaire de l'ankyrine et de la protéine 4.2, le complexe Rh participe au maintien des propriétés mécaniques de la membrane des érythrocytes.
- RhAG pourrait également intervenir dans le transport de l'ammoniac ou NH3 (Rh proteins: Key structural and functional components of the red cell membrane 2006).
Associés à de nombreuses protéines adaptatrices et régulatrices, les complexes spectrine-ankyrine-Band 3 et spectrine-protéine 4.1-glycophorine C-p55 assurent la stabilité mécanique, la déformabilité et l'organisation de la membrane des érythrocytes.
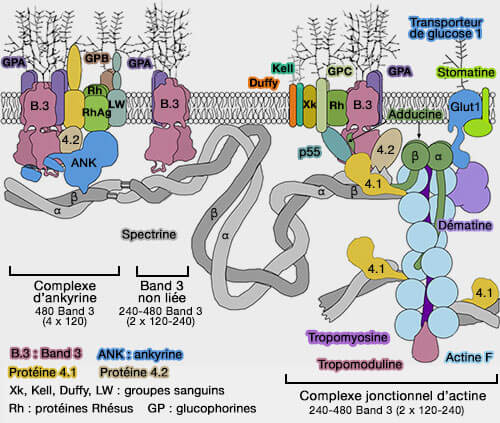
(Figure : vetopsy.fr d'après Korsgren et coll)
Retour vers les protéines de liaison des
microfilaments d'actine
avec la membrane
Biologie cellulaire et moléculaireMembrane plasmiqueNoyauCytoplasmeMitochondriesSystème endomembranaireRéticulum endoplasmiqueAppareil de GolgiEndosomesLysosomesPeroxysomesProtéasomesCytosqueletteMicrofilaments d'actineFilaments intermédiairesMicrotubulesReproduction cellulaireBiochimieTransport membranaire Moteurs moléculairesVoies de signalisation