Outre CapZ, plusieurs protéines participent au coiffage des microfilaments d'actine en contrôlant la dynamique de leurs extrémités barbée (+) et pointue (-).
Les protéines de coiffage des microfilaments d'actine autres que CapZ assurent le coiffage des deux extrémités du filament :
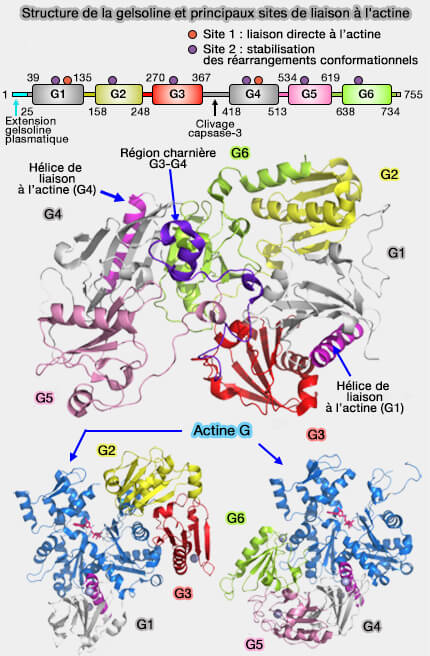
Structure de la gelsoline et ses liaisons à l'actine
(Figure : vetopsy.fr avec l'aimable
autorisation de Roberto Dominguez)
1. Contrairement à CapZ, le coiffage par la gelsoline est directement lié à son activité de sectionnement ( protéines de sectionnement).
Après avoir sectionné un microfilament d'actine, la gelsoline demeure fixée à la nouvelle extrémité barbée (+), où elle bloque à la fois l'élongation et la dépolymérisation du filament.
2. L'hélice de liaison à l'actine du domaine G1 de la gelsoline se fixe dans le sillon hydrophobe (hydrophobic clef ou target-binding cleft) situé entre les sous-domaines 1 et 3 de l'actine terminale.
Le domaine G4 possède une hélice de liaison homologue qui intervient principalement dans le mécanisme de sectionnement en se fixant à une seconde molécule d'actine ( mode d'action de la gelsoline).
Le sillon hydrophobe est également reconnu par plusieurs autres protéines de liaison à l'actine, notamment celles possédant un domaine ADF-H (ADF/cofiline, twinfiline) ou un domaine WH2.
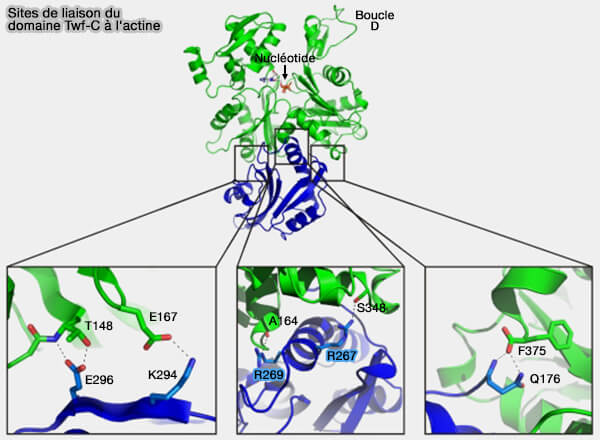
Toutefois, les résidus basiques R267 et R269 du domaine ADF-H C-terminal de la twinfiline (Twf-C), impliqués dans la liaison à l'actine et conservés fonctionnellement chez les protéines de la famille ADF/cofiline, ne sont pas présents dans les domaines de la gelsoline ( structure de la twinfiline).
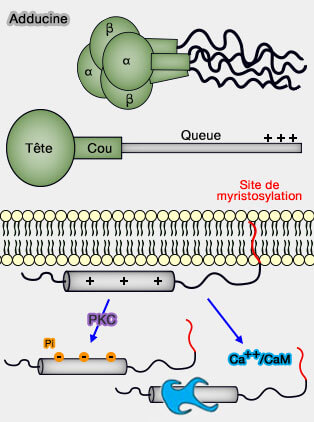
3. Outre la gelsoline, cette famille comprend également d'autres protéines capables de sectionner et de coiffer les microfilaments d'actine, notamment la villine, l'adsévérine (scinderin), CapG et l'advilline, dont les activités sont adaptées à des contextes cellulaires spécialisés ( famille de la gelsoline).
Liaison de la twinfiline à l'actine
(Figure : vetopsy.fr avec l'aimable
autorisation de Roberto Dominguez)
Elle coiffe les extrémités barbées (+) des microfilaments d'actine.
la longue hélice α, qui porte les résidus basiques R267 et R269, essentiels à la liaison avec l'actine,
la boucle précédant l'hélice C-terminale.
Sites de liaison du domaine Twf-C à l'actine
(Figure : vetopsy.fr d'après Paavilainen et coll)
2. Le coiffage de l'extrémité barbée (+) par la twinfiline met en jeu la reconnaissance du même sillon hydrophobe (hydrophobic clef ou target-binding cleft) de l'actine que celui ciblé par les protéines de la famille ADF/cofiline et par la gelsoline, suggérant un mécanisme général de reconnaissance de cette région de l'actine par plusieurs protéines de coiffage.
3. La twinfiline peut également se lier directement à CapZ par son domaine Twf-C, qui possède un site de liaison spécifique distinct de son site de liaison à l'actine.
Elle contribuerait ainsi au renouvellement dynamique des extrémités barbées en facilitant, selon le contexte cellulaire et en coopération avec d'autres protéines, la dissociation de CapZ et et son remplacement par d'autres protéines de coiffage ou des protéines d'élongation(Regulation of actin dynamics by Twinfilin 2026).
Après le sectionnement, elle peut ensuite coiffer transitoirement les nouvelles extrémités barbées (+), limitant leur réélongation ( coopération d'AIP1 avec la cofiline).
Formines
Les formines constituent un cas particulier.
Elles restent associées à l'extrémité barbée (+) des microfilaments d'actine tout en permettant leur élongation processive (nucléation et élongation par les formines).
EPS8
1. EPS8 (Epidermal growth factor receptor pathway substrate 8) est une protéine multifonctionnelle associée aux microfilaments d'actine qui possède une activité de coiffage de l'extrémité barbée (+).
Cette activité limite l'élongation des microfilaments d'actine en bloquant l'incorporation de nouvelles sous-unités à leur extrémité barbée (+) et contribue ainsi au contrôle de leur longueur.
Dans les cellules ciliées de l'oreille interne, EPS8 est enrichie à l'extrémité des stéréocils de la rangée 1 où elle forme, avec MYO15A-S, la whirline (WHRN), GPSM2 et GNAI3, un complexe impliqué dans l'allongement et le contrôle de la longueur des stéréocils extrémité apicale et croissance des stéréocils)
Protéines de coiffe de l'extrémité (-) : tropomoduline:
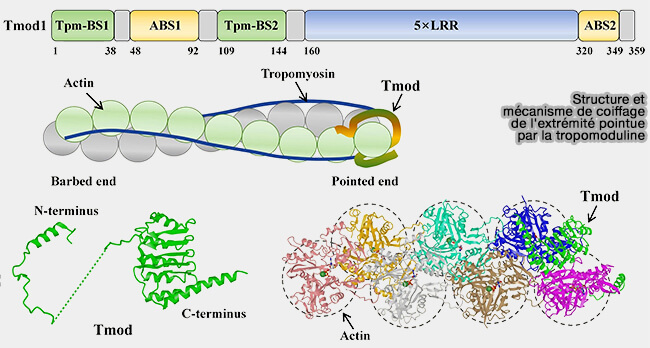
Son domaine N-terminal, non structuré et étendu, comprend deux sites de liaison à la tropomyosine (TMBS1 et TMBS2 ou Tropomyosin-Binding Sites) ainsi qu'un premier site de liaison à l'actine ABS1 (Actin-Binding Site 1), qui contacte la sous-unité terminale P0 et sa boucle D.
3. Elle inhibe à la fois l'élongation et la dépolymérisation de l'extrémité pointue (-), stabilisant ainsi la longueur des microfilaments d'actine dans les structures cellulaires où leur stabilité est indispensable.
L'activité de coiffage de la tropomyosine est fortement renforcée par sa liaison à la tropomyosine, qui stabilise son association avec l'extrémité pointue (−) des microfilaments d'actine.
Contrairement à cette dernière, elles favorisent principalement la nucléation et l'élongation des microfilaments d'actine plutôt que le coiffage de leur extrémité pointue (-).


 protéines de sectionnement).