


Constituants cellulaires
Cytosquelette : microfilaments d'actine
Protéines d'élongation
Vue d'ensemble et protéines Ena/VASP
- Biologie cellulaire et moléculaire
- Constituants de la cellule
- Membrane plasmique
- Noyau
- Cytoplasme
- Hyaloplasme/cytosol
- Structure immergées dans le hyaloplasme
- Cytosquelette
- Vue d'ensemble et rôles
- microfilaments d'actine
- Structure de l'actine
- Polymérisation de l'actine
- Protéines associées à l'actine (Actin-Binding Proteins, ABP)
- Protéines de séquestration
- Protéines de nucléation
- Protéines d’élongation
- Protéines de coiffage
- Protéines de sectionnement et de dépolymérisation
- Protéines de stabilisation
- Protéines de réticulation
- Protéines motrices (myosines)
- Protéines assurant la liaison entre les microfilaments d'actine et la membrane plasmique
- Filaments intermédiaires
- Microtubules
- Proteasome
- Cytosquelette
- Morphoplasme : organites
- Matrice extracellulaire
- Reproduction cellulaire
- Biochimie
- Transport membranaire
- Moteurs moléculaires
- Voies de signalisation

Les protéines d'élongation des microfilaments d'actine favorisent l'ajout de monomères d'actine G à l'extrémité barbée (+), notamment les formines et les protéines Ena/VASP qui assurent la croissance de nombreux réseaux et faisceaux d'actine cellulaires.
Vue d'ensemble de l'élongation
1. Les protéines d’élongation constituent une famille de protéines de liaison à l'actine (ABP ou Actin Binding Proteins) qui favorisent l’ajout préférentiel de monomères d'actine G à l'extrémité barbée (+) des microfilaments d'actine où la vitesse d'assemblage est la plus élevée, et accompagnent leur croissance.
a. Les principales sont :
- les formines, qui assurent une élongation processive des microfilaments d'actine tout en restant associées à leur extrémité barbée (+),
- les protéines Ena/VASP, qui favorisent l'élongation des microfilaments d'actine en recrutant des complexes profiline-actine et en s'opposant à l'action de certaines protéines de coiffage.
b. Certaines protéines multifonctionnelles participent également à l'élongation des microfilaments d'actine :
- la profiline, qui assure le recyclage des monomères d'actine G et leur transfert vers les protéines d'élongation,
- les protéines à domaines WH2 multiples (Tandem-monomer-binding nucleators), comme Spire, Cordon-Bleu (COBL), JMY, léiomodines...), dont la fonction principale est la nucléation, mais qui peuvent également favoriser la croissance des nouveaux microfilaments,
- la villine, protéine de réticulation des faisceaux d'actine qui possède également des activités de nucléation et d'élongation,
- certaines myosines associées aux stéréocils, notamment MYO15A et MYO3A , qui participent indirectement à l'allongement des faisceaux parallèles d'actine en transportant des protéines impliquées dans leur croissance.
c. L'activité des protéines d'élongation est étroitement liée à celle de certaines protéines de coiffage, notamment CapZ et la twinfiline, qui régulent l'accessibilité de l'extrémité barbée (+) aux monomères d'actine.
2. Les autres familles de protéines de liaison à l'actine comprennent :
- des protéines de séquestration qui séquestrent les monomères d'actine G et régulent leur disponibilité pour la polymérisation (thymosine β4, profiline, CAP1 et CAP2 (Cyclase-associated proteins), twinfiline, DNase I…),
- des protéines de nucléation qui initient la formation de nouveaux microfilaments (formines, complexe Arp2/3, protéines à domaines WH2 multiples ou tandem-monomer-binding nucleators…),
- des protéines de coiffage qui se fixent aux extrémités (+) ou (-) et contrôlent les échanges de monomères (CapZ, gelsoline, twinfiline, tropomoduline…),
- des protéines de sectionnement et de dépolymérisation qui fragmentent les microfilaments et favorisent leur renouvellement (cofiline, gelsoline…),
- des protéines de stabilisation qui limitent la dépolymérisation et stabilisent certains réseaux d'actine (tropomyosines, cortactine…),
- des protéines de réticulation qui relient plusieurs microfilaments afin de former des faisceaux ou des réseaux tridimensionnels (plastines (fimbrines), fascines, villine, espine, α-actinine, filamine…),
- des protéines motrices, les myosines, qui utilisent les microfilaments d'actine comme rails moléculaires pour produire des forces et des mouvements cellulaires,
- des protéines assurant la liaison entre les microfilaments d'actine et la membrane plasmique, comme les protéines ERM (Ezrine, Radixine, Moésine), les spectrines et la dystrophine.
L'ankyrine participe également à ces complexes d'ancrage par son interaction avec les spectrines et diverses protéines membranaires, mais sans se lier directement aux microfilaments d'actine.
Remarque : certaines ABP sont dites multifonctionnelles car elles participent à plusieurs mécanismes.
Par exemple les formines, classées dans les protéines de nucléation, peuvent aussi participer au coiffage de l'extrémité barbée (+) et à l'élongation.
Protéines Ena/VASP des filopodes
Les protéines de la famille Ena/VASP (Enabled/Vasodilator-stimulated phosphoprotein) constituent une famille d'ABP impliquées dans la régulation de la dynamique des microfilaments d'actine.
Elles favorisent principalement l'élongation des microfilaments à leur extrémité barbée (+) et participent à l'organisation de plusieurs structures cellulaires riches en actine, notamment les filopodes, les lamellipodes et les adhérences focales (cellule/MEC).
Chez les vertébrés, cette famille comprend trois protéines à organisation modulaire très conservée, mais présentant des profils d'expression tissulaire, des partenaires moléculaires et des fonctions physiologiques partiellement distincts (Cardiovascular Functions of Ena/VASP Proteins: Past, Present and Beyond 2023).
- VASP (Vasodilator-Stimulated Phosphoprotein), largement exprimée, notamment dans les plaquettes, les cellules endothéliales et les adhérences focales (cellule/MEC), régule la dynamique du cytosquelette d'actine.
- Mena (Mammalian Enabled) est principalement impliquée dans la migration cellulaire, le développement du système nerveux et certains processus invasifs des cellules tumorales.
- EVL (Ena/VASP-Like), exprimée dans de nombreux tissus mais particulièrement dans les cellules hématopoïétiques et immunitaires, participe à l'organisation du cytosquelette d'actine et à la motilité cellulaire.
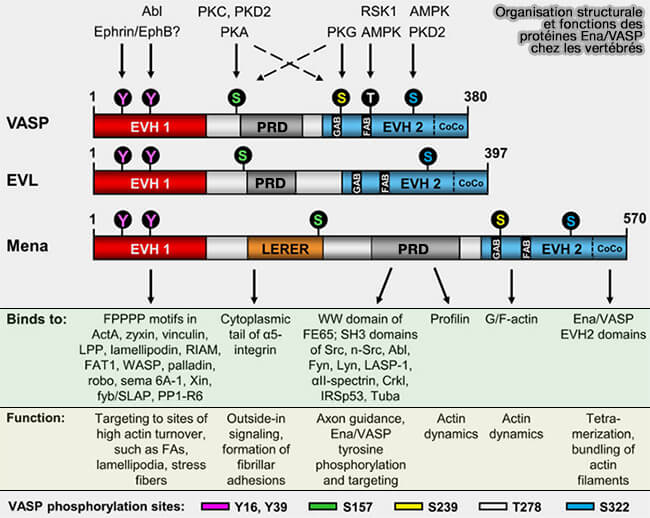
(Figure : vetopsy.fr d'après Benz et coll)
Remarque : le terme Ena/VASP provient de la protéine Ena (Enabled), initialement identifiée chez la drosophile, et de VASP découverte chez les vertébrés.
Le nom Enabled (" rendu possible ") a été attribué car les mutations du gène ena chez la drosophile favorisent l'expression de certains défauts du développement observés lors de l'inactivation du gène Abl.

Pour approfondir ce sujet, vous pouvez consulter : Ena/VASP proteins in cell edge protrusion, migration and adhesion (2022) qui synthétise la vision moderne de la famille.
Structure des protéines Ena/VASP
Les Ena/VASP contiennent plusieurs domaines (Structural basis for the recruitment of profilin–actin complexes during filament elongation by Ena/VASP 2007 et Clustering of VASP actively drives processive, WH2 domain-mediated actin filament elongation 2008).
1. Le domaine EVH1 (Ena/VASP homology 1) N-terminal, d'environ 115 résidus, appartenant à la superfamille des domaines PH.
a. Son rôle principal est d'assurer le recrutement des protéines Ena/VASP vers des sites cellulaires spécifiques riches en actine, préférentiellement un motif consensus FPPPP (D/E)FPPPPX(D/E)(D/E) présent dans de nombreuses protéines partenaires (The WH1 and EVH1 Domains of WASP and Ena/VASP Family Members Bind Distinct Sequence Motifs 2002).
b. Le domaine EVH1 peut également interagir avec certains phosphoinositides membranaires, notamment le PI(4,5)P2 ou PIP2, contribuant ainsi à la localisation des protéines Ena/VASP au voisinage de la membrane plasmique.
2. Le domaine PRD (Proline-Rich Domain) est une région centrale riche en proline qui assure principalement le recrutement des partenaires impliqués dans la polymérisation de l'actine.

(Figure : vetopsy.fr)
Bien qu'il ne soit pas subdivisé en sous-domaines structuraux clairement individualisés, plusieurs zones fonctionnelles peuvent être distinguées.
- La région N-terminale (zone de régulation) interagit avec diverses protéines contenant des domaines SH3 ou WW impliquées dans la signalisation cellulaire et le remodelage du cytosquelette d'actine.
- La région centrale (zone de recrutement) contient plusieurs motifs de liaison à la profiline (GPPPPP ou GP5) et peut ainsi recruter simultanément plusieurs complexes profiline-actine.
- La région C-terminale (zone de transfert) située à proximité du domaine EVH2, qui participe à l'acheminement des complexes profiline-actine vers le site de polymérisation situé à l'extrémité barbée (+) du microfilament en croissance. ;
3. Le domaine EVH2 (Ena/VASP homology 2) est un domaine C-terminal responsable de l'interaction directe des protéines Ena/VASP avec l'actine.
a. Il comprend trois régions fonctionnelles :
- un site de liaison à l'actine G (GAB, G-actin-binding domain), qui fixe les monomères d'actine et favorise leur incorporation dans le microfilament en croissance,
- un site de liaison à l'actine F (FAB, F-actin-binding domain), qui permet l'association des protéines Ena/VASP aux microfilaments d'actine, en particulier à leur extrémité barbée (+),
- un domaine coiled-coil (CC) qui forme une superhélice α impliquée dans la tétramérisation des protéines Ena/VASP.
b. La tétramérisation favorise le regroupement de plusieurs microfilaments d'actine et contribue à la formation de faisceaux parallèles (The EVH2 Domain of the Vasodilator-stimulated Phosphoprotein Mediates Tetramerization, F-actin Binding, and Actin Bundle Formation 1999).
Mécanisme des protéines Ena/VASP
Le mécanisme d'action des protéines Ena/VASP repose sur le recrutement de complexes profiline-actine aux sites de polymérisation et sur leur incorporation continue à l'extrémité barbée (+) des microfilaments d'actine.
1. Les protéines Ena/VASP sont recrutées à proximité de la membrane plasmique grâce à leur domaine EVH1 qui interagit avec :
- diverses protéines partenaires contenant un motif FPPPP, comme la lamellipodine au niveau des lamellipodes, la zyxine et la vinculine dans les adhérences focales (cellule/MEC) ou Robo lors du guidage axonal,
- certains phosphoinositides membranaires comme PI(4,5)P2 ou PIP2, contribuant à leur localisation au voisinage de la membrane plasmique.
2. Une fois localisées aux sites de polymérisation de l'actine, elles recrutent, par leur domaine PRD, plusieurs complexes profiline-actine qui constituent la principale source de monomères d'actine G directement utilisables pour la croissance des microfilaments (VASP is a processive actin polymerase that requires monomeric actin for barbed end association 2010)
- Le domaine EVH2 assure simultanément la liaison aux monomères d'actine G et aux microfilaments d'actine F.
- Cette organisation favorise le transfert des monomères apportés par la profiline vers l'extrémité barbée (+) du microfilament en croissance.
3. Contrairement aux protéines de coiffage comme Capz ou la gelsoline, les protéines Ena/VASP restent associées à l'extrémité barbée (+) tout en permettant l'incorporation continue de nouveaux monomères d'actine.
- Elles favorisent ainsi une élongation processive des microfilaments.
- La tétramérisation des protéines Ena/VASP permet en outre le regroupement de plusieurs extrémités barbées (+), favorisant la formation de faisceaux parallèles et le développement de structures cellulaires riches en actine, notamment les filopodes.
4. Enfin, les protéines Ena/VASP favorisent généralement la formation de réseaux d'actine peu ramifiés au détriment des réseaux fortement branchés dépendants du complexe Arp2/3, contribuant ainsi à l'organisation de structures linéaires de microfilaments.
Fonctions des protéines Ena/VASP
Les protéines Ena/VASP participent à plusieurs processus cellulaires (Ena/VASP: towards resolving a pointed controversy at the barbed end 2009).
1. En recrutant des complexes profiline-actine et en restant associées à l'extrémité barbée (+), elles favorisent une élongation processive des microfilaments d'actine en croissance.
- Elles antagonisent les protéines de coiffage de l'extrémité barbée (+) , comme CapZ et a gelsoline, favorisant ainsi la formation de microfilaments d'actine plus longs.
- Grâce à leur tétramérisation, elles peuvent également regrouper plusieurs microfilaments d'actine et contribuer à la formation de faisceaux parallèles.
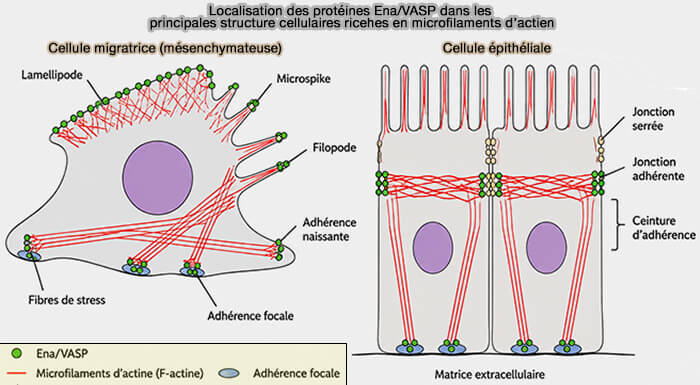
(Figure : vetopsy.fr)
2. Ces propriétés ont plusieurs conséquences (Ena/VASP proteins in cell edge protrusion, migration and adhesion 2022).
- Leur accumulation à la pointe des filopodes contribue à la formation et à la croissance de ces prolongements cellulaires.
- Grâce à leurs interactions avec de nombreuses protéines associées au cytosquelette d'actine, notamment la lamellipodine, Robo (guidage axonal), la zyxine, la vinculine et la migfiline, elles participent :
- à la dynamique des lamellipodes et des adhérences focales (cellule/MEC),
- à la migration cellulaire (Ena/VASP proteins: regulators of the actin cytoskeleton and cell migration 2003),
- au guidage axonal et au développement du système nerveux, à divers processus morphogénétiques intervenant au cours du développement embryonnaire et du remodelage tissulaire.
Retour vers les protéines associées à l'actine (ABP)
Biologie cellulaire et moléculaireMembrane plasmiqueNoyauCytoplasmeMitochondriesSystème endomembranaireRéticulum endoplasmiqueAppareil de GolgiEndosomesLysosomesPeroxysomesProtéasomesCytosqueletteMicrofilaments d'actineFilaments intermédiairesMicrotubulesReproduction cellulaireBiochimieTransport membranaire Moteurs moléculairesVoies de signalisation