


Constituants cellulaires
Cytosquelette : microfilaments d'actine
Protéines de séquestration
- Biologie cellulaire et moléculaire
- Constituants de la cellule
- Membrane plasmique
- Noyau
- Cytoplasme
- Hyaloplasme/cytosol
- Structure immergées dans le hyaloplasme
- Cytosquelette
- Vue d'ensemble et rôles
- microfilaments d'actine
- Structure de l'actine
- Polymérisation de l'actine
- Protéines associées à l'actine (Actin-Binding Proteins, ABP)
- Protéines de séquestration
- Protéines de nucléation
- Protéines d’élongation
- Protéines de coiffage
- Protéines de sectionnement et de dépolymérisation
- Protéines de stabilisation
- Protéines de réticulation
- Protéines motrices (myosines)
- Protéines assurant la liaison entre les microfilaments d'actine et la membrane plasmique
- Filaments intermédiaires
- Microtubules
- Proteasome
- Cytosquelette
- Morphoplasme : organites
- Matrice extracellulaire
- Reproduction cellulaire
- Biochimie
- Transport membranaire
- Moteurs moléculaires
- Voies de signalisation

Les protéines de séquestration contrôlent la disponibilité des monomères d'actine G en les maintenant transitoirement hors de la polymérisation ou en assurant leur recyclage avant leur réincorporation dans les microfilaments d'actine.
Vue d'ensemble de la séquestration
Le taux intracellulaire d'actine G représente environ la moitié de l'actine totale et atteint des concentrations de l'ordre de 50 à 200 µM, très supérieures à la concentration critique (Cc).
En l'absence de mécanismes régulateurs, les monomères d'actine devraient donc polymériser spontanément.
1. Les protéines de séquestration constituent une famille de protéines de liaison à l'actine (ABP ou Actin Binding Proteins) qui maintiennent une partie des monomères d'actine G dans un pool cytoplasmique et contrôlent leur disponibilité pour la polymérisation des microfilaments d'actine.
Les principales sont :
- la thymosine-β4, qui constitue le principal réservoir cytoplasmique de monomères d'actine G,
- la profiline, qui recycle les monomères d'actine et favorise leur polymérisation à l'extrémité barbée (+),
- CAP1 et CAP2, qui assurent surtout le recyclage transitoire des monomères d’actine G-ADP,
- la DNase I, endonucléase dont la liaison à l'actine G inhibe simultanément la polymérisation de l'actine et son activité enzymatique,
- la twinfiline, qui séquestre préférentiellement les monomères d'actine G-ADP tout en participant également au coiffage des microfilaments d'actine,
2. Les autres familles de protéines de liaison à l'actine comprennent :
- des protéines de nucléation qui initient la formation de nouveaux microfilaments (formines, complexe Arp2/3, protéines à domaines WH2 multiples ou tandem-monomer-binding nucleators…),
- des protéines d’élongation qui favorisent l’ajout de monomères d’actine G à l’extrémité (+) et accompagnent la croissance du microfilament (formines, Ena/VASP, …),
- des protéines de coiffage qui se fixent aux extrémités (+) ou (-) et contrôlent les échanges de monomères (CapZ, gelsoline, twinfiline, tropomoduline…),
- des protéines de sectionnement et de dépolymérisation qui fragmentent les microfilaments et favorisent leur renouvellement (cofiline, gelsoline…),
- des protéines de stabilisation qui limitent la dépolymérisation et stabilisent certains réseaux d'actine (tropomyosines, cortactine…),
- des protéines de réticulation qui relient plusieurs microfilaments afin de former des faisceaux ou des réseaux tridimensionnels (plastines (fimbrines), fascines, villine, espine, α-actinine, filamine…),
- des protéines motrices, les myosines, qui utilisent les microfilaments d'actine comme rails moléculaires pour produire des forces et des mouvements cellulaires,
- des protéines assurant la liaison entre les microfilaments d'actine et la membrane plasmique, comme les protéines ERM (Ezrine, Radixine, Moésine), les spectrines et la dystrophine.
L'ankyrine participe également à ces complexes d'ancrage par son interaction avec les spectrines et diverses protéines membranaires, mais sans se lier directement aux microfilaments d'actine.
Remarque : certaines ABP sont dites multifonctionnelles car elles participent à plusieurs mécanismes.
Par exemple les formines, classées dans les protéines de nucléation, peuvent aussi participer au coiffage de l'extrémité barbée (+) et à l'élongation.
Thymosine-β4
La thymosine-β4 (Tβ4) appartient à la famille des thymosines-β, initialement identifiées dans le thymus (β-Thymosins, small acidic peptides with multiple functions 2000).

La thymosine-β4 (Tβ4) est la principale protéine de séquestration des monomères d'actine G dans les cellules eucaryotes et le principal réservoir cytoplasmique d'actine G (Thymosin β4 and actin: binding modes, biological functions and clinical applications 2022).
Elle est présente à des concentrations micromolaires élevées dans la plupart des cellules, où elle maintient la majorité des monomères d'actine sous forme non polymérisée.
Structure et liaison à l'actine
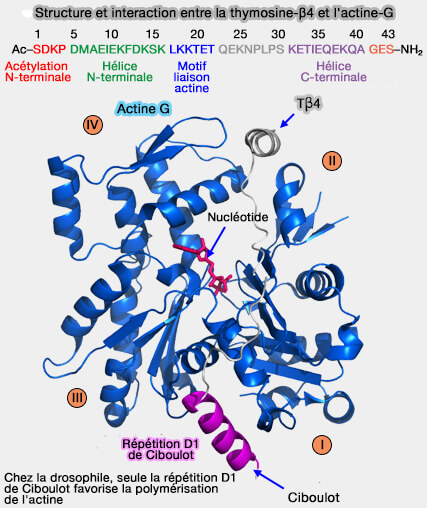
La Tβ4 est une petite protéine de 43 acides aminés qui contient peu de résidus hydrophobes et demeure largement désordonnée en solution (intrinsically disordered protein).
1. La Tβ4 possède un domaine WH2 (WASP Homology 2), principal motif de liaison à l'actine, auquel s'ajoute une hélice α C-terminale absente des autres protéines contenant un domaine WH2 (Structural basis of actin sequestration by thymosin-β4: implications for WH2 proteins 2004).
a. Le domaine WH2 est présent dans de nombreuses protéines de liaison à l'actine, notamment les NPF (Nucleation-Promoting Factor) ainsi que plusieurs protéines de nucléation comme Spire et Cordon-Bleu ( protéines à domaines WH2 multiples ou tandem-monomer-binding nucleators).
(Figure : vetopsy.fr avec l'aimable
autorisation de Roberto Dominguez)
Ces protéines intrinsèquement désordonnées régulent la dynamique des microfilaments d'actine en contrôlant leur nucléation, leur élongation, leur coiffage ou leur sectionnement.
b. Son domaine N-terminal se lie à l'actine dans le sillon hydrophobe entre les sous-domaines 1 et 3, comme les autres protéines qui contiennent WH2 et la séquence LKKT/V (ici, Leucine 17, Lysine 18, Lysine 19, Thréonine 20), qui se lie avec l'actine (The β-Thymosin/WH2 Domain: Structural Basis for the Switch from Inhibition to Promotion of Actin Assembly 2004).
Remarque : ce domaine est également retrouvé chez les invertébrés, notamment dans la protéine Ciboulot de la drosophile, qui possède trois répétitions de type thymosine β (Structure, Function, and Evolution of the β-Thymosin/WH2 (WASP-Homology2) Actin-Binding Module 2007).
- Les deux dernières séquestrent les monomères d'actine comme la Tβ4.
- La première (D1) favorise leur polymérisation et présente une activité fonctionnellement proche de celle de la profiline.
c. Son domaine C-terminal forme une hélice α supplémentaire, faisant défaut chez les autres protéines contenant un domaine WH2, qui se lie aux domaines II et IV de l'extrémité pointue.
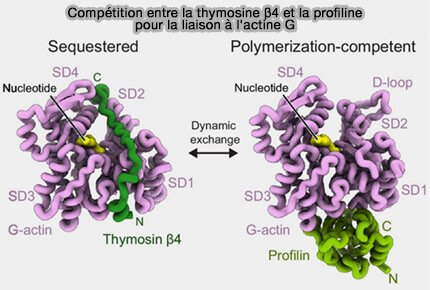
2. La thymosine-β4 se lie à un seul monomère d'actine en masquant simultanément les interfaces correspondant aux extrémités barbée (+) et pointue (-) du futur microfilament d'actine.
Cette double interaction masque les deux interfaces de polymérisation et empêche ainsi l'incorporation du monomère dans un filament en croissance.
Séquestration des monomères d'actine
1. La Tβ4 se lie à un seul monomère d'actine avec une affinité environ cent fois plus élevée pour l'actine G-ATP que pour l'actine G-ADP.
(Figure : vetopsy.fr d'après Oosterheert et coll)
Elle maintient ainsi un important pool cytoplasmique de monomères immédiatement disponibles pour la polymérisation.
2. La Tβ4 entre en compétition avec la profiline pour la liaison à l'actine G.
Lorsque la polymérisation est stimulée, la profiline favorise la libération des monomères séquestrés et leur incorporation à l'extrémité barbée (+) des microfilaments d'actine (Profilin Promotes Barbed-end Actin Filament Assembly without Lowering the Critical Concentration 1999).
Remarque : au-delà de son rôle dans la dynamique des microfilaments d'actine, la thymosine-β4 intervient également dans la cicatrisation, l'angiogenèse, la réparation tissulaire et la modulation de la réponse inflammatoire (Progress on the Function and Application of Thymosin β4 2021) .
Profiline
La profiline est une protéine de liaison à l'actine qui joue un rôle central dans la dynamique des microfilaments d'actine.
La profiline est l'une des protéines les plus abondantes du cytoplasme.
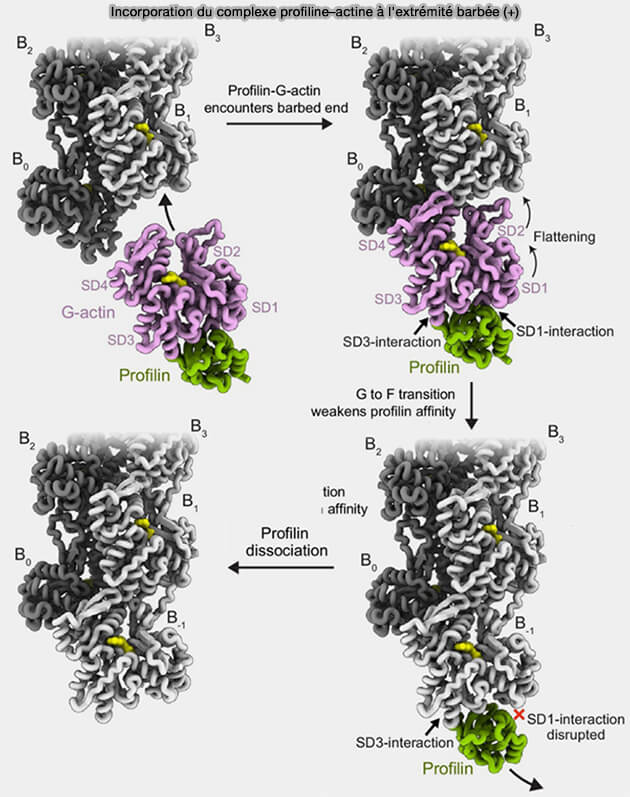
1. Son rôle peut paraître contradictoire (The actin binding protein profilin 1 localizes inside mitochondria and is critical for their function 2024).
(Figure : vetopsy.fr d'après Oosterheert et coll)
a. D'une part, elle se lie aux monomères d'actine G et inhibe leur nucléation spontanée, ce qui la rattache fonctionnellement aux protéines de séquestration.
Contrairement à la thymosine-β4, cette liaison est transitoire et ne correspond pas à une véritable séquestration, mais au recyclage des monomères avant leur réincorporation dans les microfilaments d'actine.
b. D'autre part, elle favorise l'échange de l'ADP contre un ATP sur l'actine G (Actin Binding Proteins : Regulation of Cytoskeletal Microfilaments 2003).
- Le complexe profiline-actine, principal réservoir de monomères immédiatement polymérisables dans les cellules eucaryotes, ne s'incorpore qu'à l'extrémité barbée (+) des microfilaments d'actine, où il abaisse la concentration critique nécessaire à leur polymérisation, notamment en association avec les formines (Profilin-mediated Competition between Capping Protein and Formin Cdc12p during Cytokinesis in Fission Yeast 2005).
- Aux concentrations physiologiques (actine G-ATP : 0,1 à 1 µM ; complexe profiline-actine : 5 à 40 µM), le complexe profiline-actine contribue majoritairement à la polymérisation des microfilaments d'actine.
2. La profiline possède deux principaux sites de liaison indépendants :
- l'un reconnaît les monomères d'actine G,
- l'autre les domaines riches en proline présents dans de nombreuses protéines régulatrices des microfilaments d'actine.

(Figure : vetopsy.fr avec l'aimable
autorisation de Roberto Dominguez)
3. Comme la plupart des autres protéines de liaison à l'actine (ABP), la profiline se lie au sillon hydrophobe situé entre les sous-domaines 1 et 3 de l'actine, mais sur une face différente de celle occupée par les protéines contenant un domaine WH2.
a. Cette disposition lui permet de se lier simultanément à l'actine et à des protéines possédant des domaines riches en proline, notamment les formines, WASP et Ena/VASP grâce à leur site de liaison à l'actine G.
Elle présente une plus forte affinité pour ces complexes ternaires que pour les complexes binaires (Clustering of VASP actively drives processive, WH2 domain-mediated actin filament elongation 2008).
b. Sa liaison induit l'ouverture du sillon nucléotidique (nucleotide-binding cleft), favorisant l'échange de l'ADP contre un ATP sur l'actine G.
4. La profiline entre en compétition avec :
- la thymosine-β4, dont elle favorise la dissociation des monomères destinés à la polymérisation,
- les protéines de coiffe comme CapZ,
- certaines protéines impliquées dans le renouvellement des microfilaments, notamment les protéines de la famille ADF/cofiline (Profilin enhances cofilin induced actin dynamics 2023).
5. La profiline est régulée par le PI(4,5)P2 ou PIP2membranaire.
- La profiline peut se lier soit au PIP2, soit à l'actine G, car les deux sites de liaison se chevauchent.
- L'hydrolyse du PIP2 par la phospholipase C, première étape de la voie de signalisation produisant les seconds messagers IP3 et DAG, libère la profiline, qui peut alors interagir avec les monomères d'actine et favoriser leur incorporation dans les microfilaments.
- Ce mécanisme assure le couplage entre plusieurs voies de signalisation cellulaires, notamment la voie Wnt non canonique, et la dynamique du cytosquelette d'actine.
CAP1 et CAP2 (Cyclase-associated proteins)
Les protéines CAP1 (Cyclase-associated protein 1) et CAP2 ne sont pas des protéines de séquestration au sens strict comme la thymosine β4, mais des protéines impliquées dans le recyclage des monomères d'actine G (Cyclase-associated Protein (CAP) Acts Directly on F-actin to Accelerate Cofilin-mediated Actin Severing across the Range of Physiological pH 2012).
CAP1 et CAP2 ne doivent pas être confondues avec CapZ, une protéine de coiffage de l'extrémité barbée (+) des microfilaments d'actine.
Structure
1. CAP1 et CAP2 sont deux isoformes très proches partageant la même organisation structurale et le même mécanisme d'action.
- CAP1 est exprimée dans la plupart des tissus.
- CAP2 est particulièrement abondante dans le muscle squelettique, le muscle cardiaque et le cerveau.
Remarque : CAP1 et CAP2 sont les homologues chez les mammifères de Srv2 (Suppressor of Ras val2), identifiée initialement chez les levures comme partenaire de l'adénylcyclase avant que son rôle majeur dans le renouvellement des microfilaments d'actine ne soit mis en évidence.
Cela explique pourquoi une partie importante de la littérature utilise encore le nom Srv2/CAP.

Vous pouvez lire : CAPt’n of Actin Dynamics: Recent Advances in the Molecular, Developmental and Physiological Functions of Cyclase-Associated Protein (CAP) (2020).
(Figure : vetopsy.fr d'après Rust et coll)
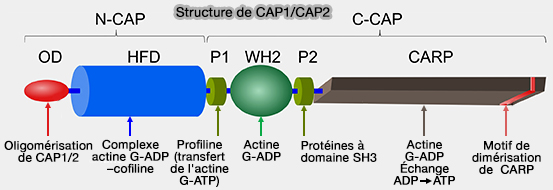
2. CAP1 et CAP2 possèdent une organisation modulaire très conservée comprenant :
- un domaine coiled-coil OD (oligomerization domain) N-terminal responsable de l'oligomérisation de CAP1/CAP2,
- un domaine hélicoïdal (HFD, helical folded domain) favorisant la liaison au complexe actine-cofiline (Srv2/cyclase-associated protein forms hexameric shurikens that directly catalyze actin filament severing by cofilin 2013).
Ce domaine reconnaît spécifiquement les complexes actine-cofiline, mais ne se lie ni à la cofiline libre ni aux monomères d'actine G (Reconstitution and Dissection of the 600-kDa Srv2/CAP Complex : roles for oligomerization and cofilin-actin binding in driving actin turnover 2009).
- un premier domaine riche en proline (P1) , capable d'interagir avec la profiline et de faciliter le transfert des monomères d'actine G-ATP vers cette dernière (Mechanism and biological role of profilin-Srv2/CAP interaction 2007),
- un domaine WH2 (WASP Homology 2) participant à la liaison aux monomères d'actine,
- un second domaine riche en proline (P2), impliqué dans les interactions avec plusieurs protéines possédant un domaine SH3, contribuant au recrutement et à la localisation de CAP1/CAP2 au sein du cytosquelette d'actine,
- un domaine C-terminal CARP (CAP and RP2 domain), constitué principalement de feuillets β (β sheet).
Ce domaine possède un motif de dimérisation permettant l'association de deux domaines CARP en un dimère fonctionnel, indispensable à la liaison de haute affinité avec les monomères d'actine G-ADP et à l'activité de facteur d'échange nucléotidique.
Mécanisme d'action de CAP1/CAP2
1. Après sa fixation aux complexes actine G-ADP-cofiline situés à l'extrémité pointue (-), le domaine HFD de CAP1/CAP2 favorise, en coopération avec la cofiline, la libération des deux sous-unités terminales (P0 et P1) (étape A)
a. Cette liaison déstabilise les interactions entre les deux sous-unités terminales (étape 2), puis favorise leur libération à partir de l'extrémité pointue (-) (étape C).
b. Le monomère d’actine G-ADP-cofiline ainsi libéré est ensuite transféré du domaine HFD vers le domaine CARP de CAP1/CAP2 (étape D).
Le domaine WH2 coopère alors avec le domaine CARP pour stabiliser la liaison au monomère d'actine G-ADP et cette interaction se substitue progressivement à celle de la cofiline, provoquant sa dissociation et permettant ainsi son recyclage.
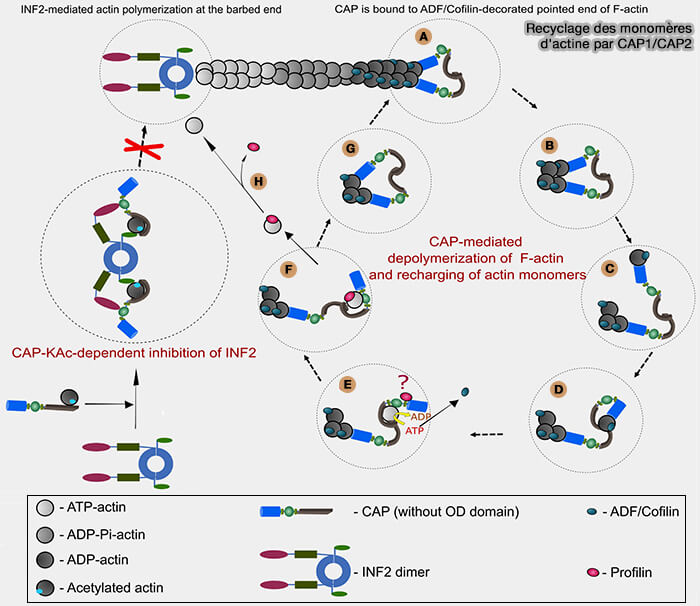
(Figure : vetopsy.fr d'après Rust et coll)
2. Les domaines WH2 et CARP maintiennent transitoirement le monomère d'actine G-ADP associé à CAP1/CAP2, ce qui permet l'échange de l'ADP contre de l'ATP (A central role for the WH2 domain of Srv2/CAP in recharging actin monomers to drive actin turnover in vitro and in vivo 2011).
3. CAP1/CAP2 agit comme un facteur d'échange nucléotidique, en accélérant le remplacement de l'ADP par un ATP sur le monomère d'actine (étape E)
- Par son premier domaine riche en proline (P1), CAP1/CAP2 interagit avec la profiline, facilitant le transfert du monomère d'actine G-ATP vers cette dernière (étapes F) (Mechanism and biological role of profilin-Srv2/CAP interaction 2007).
4. CAP1/CAP2 est recyclée et revient agir à l'extrémité pointue (-) pour prendre en charge un nouveau complexe actine-cofiline (étape F)
5. L'actine G-ATP liée à la profiline peut alors être rapidement réincorporée à l'extrémité barbée (+ des microfilaments d'actine en croissance (étape G)
DNase 1
1. La DNase 1 (désoxyribonuclease 1) est une endonucléase qui se lie :
- aux monomères d'actine G avec une très forte affinité,
- aux microfilaments d'actine avec une faible affinité.

(Figure : vetopsy.fr avec l'aimable
autorisation de Roberto Dominguez)
2. Son rôle dans la dynamique des microfilaments d'actine demeure discuté (Structural insights into actin filament turnover 2025).
a. La DNase 1 peut être considérée comme une protéine de séquestration, car sa liaison à l'actine G empêche l'incorporation de ce monomère dans les microfilaments d'actine.
- Comme CAP1/CAP2, la DNase 1 contribue ainsi à retirer transitoirement des monomères d'actine du cycle de polymérisation, en favorisant la dissociation à partir des deux sous-unités terminales (P0 et P1) de l'extrémité pointue (-).
- Toutefois, contrairement à CAP1/CAP2, elle ne participe pas à leur recyclage en vue de leur réincorporation dans les microfilaments.
b. Inversement, la formation du complexe actine G-DNase 1 inhibe fortement l'activité endonucléase de la DNase 1, suggérant également un mécanisme de régulation et peut-être de stockage de cette enzyme, limitant son activité vis-à-vis de l'ADN.
Twinfiline
La twinfiline est une protéine qui présente une affinité environ dix fois plus élevée pour les monomères d'actine G-ADP que pour les monomères d'actine G-ATP (Structure of the actin-depolymerizing factor homology domain in complex with actin 2008).
Son rôle est double :
- elle séquestre préférentiellement les monomères d'actine G-ADP,
- elle coiffe les microfilaments d'actine à leur extrémité barbée (+).
La structure et le rôle de la twinfiline dans le coiffage des microfilaments d'actine sont étudiés dans un chapitre spécifique.
Retour vers les protéines associées à l'actine (ABP)
Biologie cellulaire et moléculaireMembrane plasmiqueNoyauCytoplasmeMitochondriesSystème endomembranaireRéticulum endoplasmiqueAppareil de GolgiEndosomesLysosomesPeroxysomesProtéasomesCytosqueletteMicrofilaments d'actineFilaments intermédiairesMicrotubulesReproduction cellulaireBiochimieTransport membranaire Moteurs moléculairesVoies de signalisation