Les protéines de coiffage des microfilaments d'actine contrôlent la dynamique des extrémités barbée (+), en particulier CapZ, et pointue (−), en régulant leur élongation, leur dépolymérisation et leur stabilité.
Remarque : certaines ABP multifonctionnelles qui ne constituent pas des protéines de coiffage spécialisés peuvent également favoriser le coiffage des microfilaments d'actine.
C'est notamment le cas de la villine, protéine de la famille de la gelsoline qui possède également des activités de réticulation, de nucléation et de sectionnement.
2. Les autres familles de protéines de liaison à l'actine comprennent :
des protéines d’élongation qui favorisent l’ajout de monomères d’actine G à l’extrémité (+) et accompagnent la croissance du microfilament (formines, Ena/VASP, …),
des protéines motrices, les myosines, qui utilisent les microfilaments d'actine comme rails moléculaires pour produire des forces et des mouvements cellulaires,
L'ankyrine participe également à ces complexes d'ancrage par son interaction avec les spectrines et diverses protéines membranaires, mais sans se lier directement aux microfilaments d'actine.
Remarque : certaines ABP sont dites multifonctionnelles car elles participent à plusieurs mécanismes.
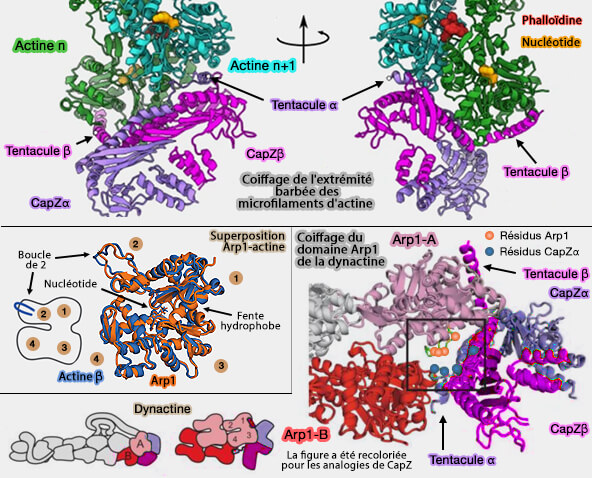
Coiffe de l'extrémité barbée de l'actine et de la dynactine
(Figure : vetopsy.fr d'après Funk et coll et Urnavicius et coll)
Structure
CapZ se présente sous plusieurs isoformes.
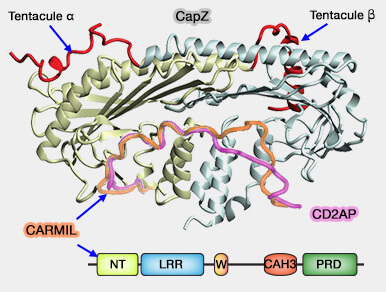
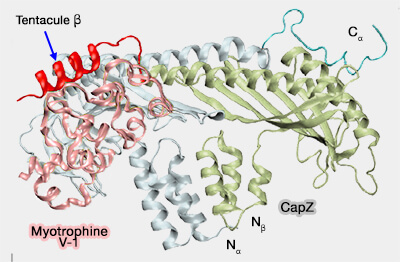
Structure de CapZ et ses deux tentacules
(Figure : vetopsy.fr d'après Adam Zwolak)L'isoforme sarcomérique CapZ α1β1 est localisée au niveau de la ligne Z des sarcomères, d'où son nom, où elle interagit avec l'α-actinine.
1. CapZ, composée de deux sous-unités α et β (30 à 35 kDa) semblables dans leur conformation structurelle, mais pas dans leur séquence, forme une molécule allongée hétérodimérique : sa structure ressemble un peu à un champignon, avec une tige et un chapeau (Structures of the free and capped ends of the actin filament 2024).
Le domaine N-terminal est constitué d'un faisceau de trois hélices antiparallèles (hélice 1-3)
Le domaine central est composé de quatre brins β (1-4 pour la sous-unité α et 1-3 trois brins pour la sous-unité β).
Le domaine C-terminal comprend un feuillet β (β sheet) antiparallèle formé par cinq brins β consécutifs (5-9), flanqué d'un côté par une hélice courte N-terminale (hélice 4) et une longue hélice C-terminale (hélice 5).
2. Le domaine C-terminal se prolonge par une extension d'environ 30 acides aminés, constituée d'une longue boucle suivie d'une hélice (hélice 6).
Le tentacule α est composée d'une région non-structurée possédant une hélice de 4 résidus en son milieu.
Le tentacule β amphipathique, plus long que le tentacule α, déborde largement de la structure de la molécule et n'a aucune interaction avec le reste de la molécule de CP.
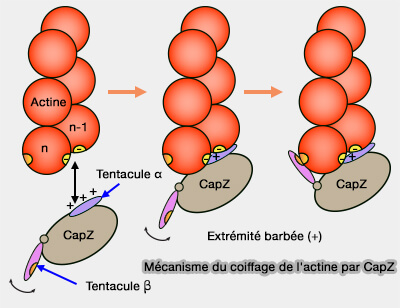
Mécanisme du coiffage de l'actine par CapZ
(Figure : vetopsy.fr)
b. Chacun des tentacules possède un résidu arginine - Arg259(α) et Arg244(β) -, pivot autour duquel se déplace le tentacule correspondant.
La suppression du tentacule α divise par 5 000 l'affinité de CP pour l'extrémité barbée de l'actine et réduit sa constante de vitesse d'association (on-rate) d'un facteur 20.
La suppression du tentacule β diminue son affinité d'environ 200 fois, sans modifier son on-rate.
d. La fixation de CapZ sur l'extrémité barbée (+) de l'actine est décrite par un mécanisme en deux étapes.
Tout d'abord, les résidus basiques du tentacule α, associés à ceux du cœur de la sous-unité β, interagissent électrostatiquement avec un groupe de résidus acides de l'extrémité barbée de l'actine.
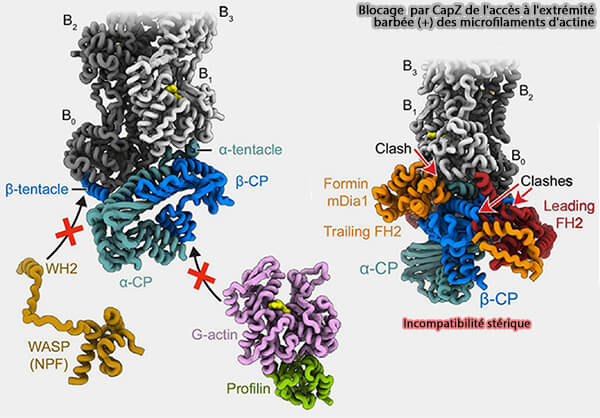
3. Le coiffage de l'extrémité barbée (+) par CapZ empêche également la fixation d'autres protéines utilisant cette extrémité, notamment les protéines à domaine WH2 et les formines, ce qui bloque l'élongation des microfilaments d'actine.
Blocage par CapZ de l'accès à l'extrémité barbée (+) des microfilaments d'actine
(Figure : vetopsy.fr d'après Oosterheert et coll)
inhibent son activité de coiffage ou favorisent son décoiffage.
Protéines à motif CPI
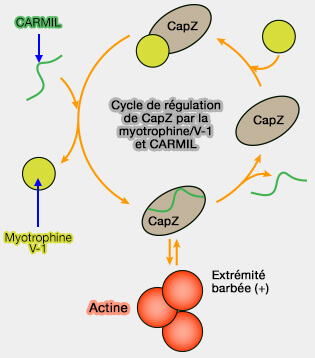
Un motif protéique appelé CPI (Capping Protein Interaction), capable de se lier directement à CapZ et d'inhiber son activité de coiffage ou de favoriser le décoiffage des microfilaments d'actine, a été identifié dans plusieurs protéines.
Premièrement, en se liant à CapZ libre, il crée des complexes (CP/CAH3) dont l'affinité est réduite pour l'extrémité barbée de l'actine.
Deuxièmement, en se liant à CapZ qui coiffe l'actine, CAH3 multiplie par 300 sa vitesse de dissociation, ce qui permet de décoiffer très rapidement les filaments.
CKIP-1 (Casein Kinase 2-Interacting Protein-1, également appelée PLEKHO1), protéine adaptatrice qui se lie à CapZ et module son activité,
CD2AP (CD2-Associated Protein) et Cin85 (Cbl-interacting protein), protéines adaptatrices qui régulent CapZ et participent au remodelage du cytosquelette d'actine en aval de récepteurs membranaires,
Liaison myotrophine/V-1 avec CapZ
(Figure : vetopsy.fr d'après Cooper)
PIP2 se lie à trois résidus basiques de la surface de CapZ, Lys256 et Arg260 de la sous-unité α et Arg225 de la sous-unité β, à proximité de la sous-unité α en C-terminal.
Ces résidus étant également impliqués dans la liaison de CapZ à l'actine, la fixation du PIP2 entre en compétition avec celle des microfilaments d'actine et inhibe ainsi l'activité de coiffage.
Rôles de CapZ
1. Le coiffage de l'extrémité barbée (+) par CapZ contribue à l'organisation et au renouvellement des réseaux de microfilaments d'actine.
b. En limitant l'élongation des microfilaments, CapZ favorise la formation de filaments courts et rigides, capables d'exercer une poussée efficace sur la membrane plasmique.
En coiffant les extrémités barbées, CapZ empêcherait les domaines WH2 des facteurs de promotion de la nucléation (NPF) de s'y fixer, les maintenant ainsi disponibles pour recruter des monomères d'actine G et activer le complexe Arp2/3.
Ce mécanisme, appelé barbed end interference, ne modifierait pas le site de nucléation, qui demeure le flanc d'un microfilament préexistant.