


Constituants cellulaires
Cytosquelette : microfilaments d'actine
Protéines de stabilisation
Vue d'ensemble et
tropomyosine
- Biologie cellulaire et moléculaire
- Constituants de la cellule
- Membrane plasmique
- Noyau
- Cytoplasme
- Hyaloplasme/cytosol
- Structure immergées dans le hyaloplasme
- Cytosquelette
- Vue d'ensemble et rôles
- microfilaments d'actine
- Structure de l'actine
- Polymérisation de l'actine
- Protéines associées à l'actine (Actin-Binding Proteins, ABP)
- Protéines de séquestration
- Protéines de nucléation
- Protéines d’élongation
- Protéines de coiffage
- Protéines de sectionnement et de dépolymérisation
- Protéines de stabilisation
- Protéines de réticulation
- Protéines motrices (myosines)
- Protéines assurant la liaison entre les microfilaments d'actine et la membrane plasmique
- Filaments intermédiaires
- Microtubules
- Proteasome
- Cytosquelette
- Morphoplasme : organites
- Matrice extracellulaire
- Reproduction cellulaire
- Biochimie
- Transport membranaire
- Moteurs moléculaires
- Voies de signalisation

Les protéines de stabilisation limitent la dépolymérisation des microfilaments d'actine dont les principales représentantes sont les tropomyosines, une famille de protéines présentes sous de nombreuses isoformes qui s'associent le long des filaments d'actine.
Vue d'ensemble de la stabilisation
1. Les protéines de stabilisation constituent une famille de protéines associées à l'actine (ABP ou Actin Binding Protein) qui se fixent aux microfilaments d'actine et limitent leur dépolymérisation, leur sectionnement ou leur désassemblage.
Elles contribuent ainsi à la stabilité et à la spécialisation fonctionnelle des différents réseaux de microfilaments d'actine.
a. Les principales sont :
- les tropomyosines, qui se fixent le long des microfilaments d'actine, limitent leur dépolymérisation et leur sectionnement, et contribuent à la spécialisation fonctionnelle des différents réseaux d'actine,
- la contactine, qui se fixe aux réseaux ramifiés d'actine associés au complexe Arp2/3, stabilise les jonctions de branchement et limite leur débranchage
b. Certaines protéines multifonctionnelles participent également à l'élongation des microfilaments d'actine :
- la tropomoduline, protéine de coiffage de l'extrémité pointue (-), qui stabilise certaines populations de microfilaments d'actine en limitant les échanges de monomères à cette extrémité,
- CapZ, protéine de coiffage de l'extrémité barbée (+), qui contribue à la stabilité de certains réseaux de microfilaments d'actine en contrôlant les échanges de monomères à cette extrémité,
- les formines, qui peuvent protéger l'extrémité barbée (+) des microfilaments d'actine lorsqu'elles demeurent associées aux filaments nouvellement formés,
- certaines myosines associées aux stéréocils, notamment MYO15A et MYO3A, qui participent au maintien des faisceaux parallèles de microfilaments d'actine en transportant des protéines impliquées dans leur croissance et leur stabilité..
c. L'activité des protéines d'élongation est étroitement liée à celle de certaines protéines de coiffage, notamment CapZ et la twinfiline, qui régulent l'accessibilité de l'extrémité barbée (+) aux monomères d'actine.
2. Les autres familles de protéines de liaison à l'actine comprennent :
- des protéines de séquestration qui séquestrent les monomères d'actine G et régulent leur disponibilité pour la polymérisation (thymosine β4, profiline, CAP1 et CAP2 (Cyclase-associated proteins), twinfiline, DNase I…),
- des protéines de nucléation qui initient la formation de nouveaux microfilaments (formines, complexe Arp2/3, protéines à domaines WH2 multiples ou tandem-monomer-binding nucleators…),
- des protéines d’élongation qui favorisent l’ajout de monomères d’actine G à l’extrémité (+) et accompagnent la croissance du microfilament (formines, Ena/VASP, …),
- des protéines de coiffage qui se fixent aux extrémités (+) ou (-) et contrôlent les échanges de monomères (CapZ, gelsoline, twinfiline, tropomoduline…),
- des protéines de sectionnement et de dépolymérisation qui fragmentent les microfilaments et favorisent leur renouvellement (cofiline, gelsoline…),
- des protéines de réticulation qui relient plusieurs microfilaments afin de former des faisceaux ou des réseaux tridimensionnels (plastines (fimbrines), fascines, villine, espine, α-actinine, filamine…),
- des protéines motrices, les myosines, qui utilisent les microfilaments d'actine comme rails moléculaires pour produire des forces et des mouvements cellulaires,
- des protéines assurant la liaison entre les microfilaments d'actine et la membrane plasmique, comme les protéines ERM (Ezrine, Radixine, Moésine), les spectrines et la dystrophine.
L'ankyrine participe également à ces complexes d'ancrage par son interaction avec les spectrines et diverses protéines membranaires, mais sans se lier directement aux microfilaments d'actine.
Remarque : certaines ABP sont dites multifonctionnelles car elles participent à plusieurs mécanismes.
Par exemple les formines, classées dans les protéines de nucléation, peuvent aussi participer au coiffage de l'extrémité barbée (+) et à l'élongation.
Tropomyosines
Les tropomyosines (Tm) constituent une famille de protéines associées aux microfilaments d'actine présentes dans la plupart des cellules eucaryotes.
- Dans les muscles striés et lisses, elles régulent les interactions entre l'actine et la myosine et jouent un rôle essentiel dans la contraction musculaire.
- Dans les cellules non musculaires, elles se fixent le long des microfilaments d'actine, contribuent à leur stabilisation et participent à la spécialisation fonctionnelle des différents réseaux du cytosquelette d'actine.
Isoformes de la tropomyosine
La diversité des fonctions assurées par les tropomyosines repose en grande partie sur l'existence de nombreuses isoformes dont l'expression varie selon les tissus, les types cellulaires et les compartiments intracellulaires(A systematic nomenclature for mammalian tropomyosin isoforms 2015 et Cytoskeletal tropomyosins: choreographers of actin filament functional diversity 2013).
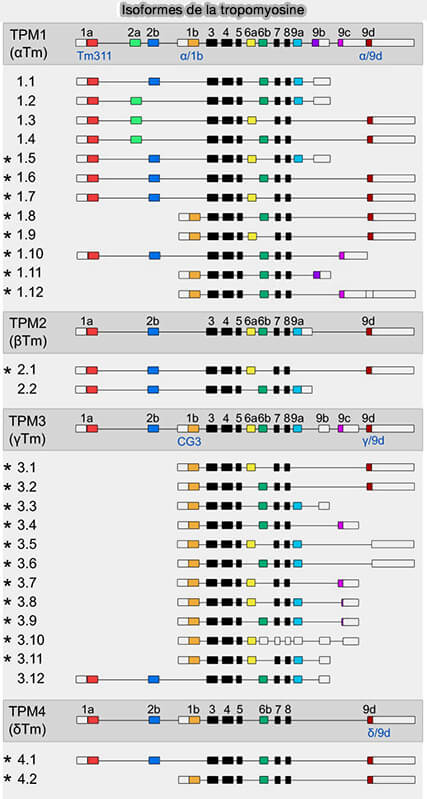
(Figure : vetopsy.fr d'après Manstein et coll)
1. Chez les mammifères, plus de 40 isoformes de tropomyosine sont produites par épissage alternatif de quatre gènes distincts (TPM1 à TPM4) ( (Tropomyosin-Based Regulation of the Actin Cytoskeleton in Time and Space 2008).
Historiquement, les tropomyosines ont été classées en tropomyosines de haut poids moléculaire (HMW, High Molecular Weight), comprenant environ 284 acides aminés, et en tropomyosines de faible poids moléculaire (LMW, Low Molecular Weight), comprenant environ 248 acides aminés
a. Dans les systèmes contractiles (muscles striés et lisses), l'activité de la tropomyosine ne fait intervenir que 5 isioformes de la tropomysoine (3 pour les muscles striés et 2 pour les lisses) pour 4 isoformes de l'actine (αskeletal-actine, αcardiac-actine), αsmooth-actine et βsmooth-actine).
b. À l'inverse, l'activité diversifiée de la tropomyosine sur le cytosquelette utilise environ 40 iosformes de tropomyosine pour que 2 isoformes de l'actine (βcyto-actine et γcyto-actine) (Actin–tropomyosin distribution in non-muscle cells 2019)
2. La régulation temporelle et spatiale de l'expression des isoformes de tropomyosine contribue à la spécialisation fonctionnelle des différentes populations de microfilaments d'actine au sein d'une même cellule ( spécialisation des populations de microfilaments d'actine).
Ces isoformes présentent des distributions intracellulaires distinctes et confèrent aux microfilaments d'actine auxquels elles sont associées des propriétés structurales et fonctionnelles spécifiques.
Structure de la tropomyosine
Les tropomyosines sont des protéines fibreuses constituées de deux chaînes polypeptidiques α-hélicoïdales enroulées l'une autour de l'autre pour former un dimère en coiled-coil (superhélice).
- Dans le cytosquelette d'actine, les tropomyosines sont principalement présentes sous forme d'homodimères.
- Sans les tissus musculaires, les hétérodimères sont plus fréquents dans les tissus musculaires.

(Figure : vetopsy.fr copie originale non retrouvée)
La tropomyosine fut la première protéine à domaine dont la structure a été caractérisée.
Malgré son apparente simplicité, la tropomyosine présente une flexibilité structurale qui contribue à son adaptation à la surface des microfilaments d'actine et à la régulation de leurs propriétés fonctionnelles.
Heptades de la tropomyosine
Les tropomyosines sont constituées d'une succession de motifs de sept acides aminés appelés " heptades ", notés a-b-c-d-e-f-g, qui se répètent tout au long de la molécule (Deciphering the design of the tropomyosin molecule 2001).
- Les heptades sont également organisées en sept répétitions quasi régulières, appelées périodes (I à VII), correspondant approximativement à la distance séparant deux monomères d'actine successifs le long du filament.
- Cette organisation contribue à l'adaptation de la tropomyosine à la surface des microfilaments d'actine.
1. a et d sont des résidus hydophobes (apolaires, en particulier le plus souvent la leucine en d).
a. Ces résidus s'emboitent comme des boutons-pressions (modèle " knobs-into-holes " proposé par Crick en 1953) grâce à l'enroulement des deux hélices-α (trois tours complets par molécule) qui forment alors le domaine coiled-coil (superhélice)
- Cette organisation présente des similitudes avec une glissière à leucine (leucine-zipper) et contribue à la stabilité les molécules (X-ray Structure of the GCN4 Leucine Zipper, a Two-Stranded, Parallel Coiled Coil 1991).
- L'interface entre les hélices est appelé aussi coeur.

(Figure : vetopsy.fr)
b. La molécule de tropomyosine (sauf chez les levures) est la seule des protéines α-fibreuses à teneur aussi élevée en résidus alanine, environ 35 % des résidus occupant les positions d de la tropomyosine du muscle strié des vertébrés sont des alanines (Stabilizing and Destabilizing Clusters in the Hydrophobic Core of Long Two-stranded α-Helical Coiled-coils 2004).
- Les résidus a-d sont interrompus irrégulièrement par des résidus de déstabilisation, qui comprennent les six groupes alanines (dits groupes Ala, " Ala clusters ", et d'autres résidus acides - D137 et E218 - et polaires - Q263 et Y267 - (Probing the Flexibility of Tropomyosin and Its Binding to Filamentous Actin Using Molecular Dynamics Simulations 2013).
- Cette flexibilité contribue à l'adaptation de la tropomyosine aux différentes positions qu'elle peut adopter à la surface du filament d'actine, notamment dans les états bloqué, fermé et ouvert décrits dans les systèmes contractiles.
2. Les positions e et g sont fréquemment occupées par des résidus chargés de signe opposé qui établissent des interactions ioniques (ponts salins) entre les deux hélices α.
Ces interactions renforcent la stabilité du dimère et contribuent au maintien de sa conformation globale.
Domaines N- et C-terminal
Les molécules de tropomyosine sont liées entre elles tête-bêche le long des microfilaments d'actine (Solution NMR Structure of the Junction between Tropomyosin Molecules: Implications for Actin Binding and Regulation 2006).
1. Les extrémités N-terminales et C-terminales de chacune des molécules se chevauchent (" overlap complex " ).
- Dans ce complexe, l'extrémité C-terminale d'une molécule s'ouvre légèrement et interagit avec l'extrémité N-terminale de la molécule suivante sur une courte région de chevauchement, ccomprenant selon les isoformes environ 9 à 15 résidus.
- Chez certains hétérodimères musculaires, cette région est plus étendue.
2. Cette association tête-bêche permet la formation d'un polymère continu de tropomyosine qui suit la surface hélicoïdale du microfilament d'actine et favorise une liaison coopérative à celui-ci.
Liaison avec l'actine
1. La tropomyosine est une ABP (Actin Binding Protein), bien que les interactions individuelles entre la tropomyosine et l'actine soient relativement faibles (Structure of the Rigor Actin-Tropomyosin-Myosin Complex 2014).
a. La tropomyosine s'étend sur sept monomères d'actine successifs et suit le sillon hélicoïdal qui parcourt la surface du microfilament d'actine, à la manière d'un long ruban disposé le long du filament (Deciphering the design of the tropomyosin molecule 2001)

(Figure : vetopsy.fr d'après Brown)
La distance entre la tropomyosine et l'actine est de 10,5 Å et elle semble " flotter " dans le sillon de l'actine-F, tout en restant maintenue par de multiples interactions électrostatiques.
b. La liaison tropomyosine-actine est assurée en majorité par des liaisons électrostatiques (Structure of the mid-region of tropomyosin: Bending and binding sites for actin 2005).
- Les résidus 169 à 172 de la tropomyosine s'alignent avec les résidus 329 à 333 de l'actine.
- Plusieurs interactions électrostatiques contribuent ensuite à la liaison entre les deux protéines, notamment entre les résidus 177, 180, 181 et 184 de la tropomyosine et les résidus Arg-147, Lys-326 et Lys-328 de l'actine.
2. La stabilité de l'ensemble résulte à la fois des interactions entre la tropomyosine et l'actine et des interactions tête-bêche entre les molécules successives de tropomyosine.
En revanche, en l'absence d'actine, les assemblages de tropomyosine sont beaucoup moins stables.
Fonctions de la tropomyosine
Biologie cellulaire et moléculaireMembrane plasmiqueNoyauCytoplasmeMitochondriesSystème endomembranaireRéticulum endoplasmiqueAppareil de GolgiEndosomesLysosomesPeroxysomesProtéasomesCytosqueletteMicrofilaments d'actineFilaments intermédiairesMicrotubulesReproduction cellulaireBiochimieTransport membranaire Moteurs moléculairesVoies de signalisation