La calmoduline (CaM ou Calcium-Modulated protein) est une protéine intracellulaire multifonctionnelle de liaison aux ions Ca2+ exprimée dans toutes les cellules eucaryotes.
La CaM agit comme un capteur et un effecteur du Ca2+, second messager dont la liaison à la CaM modifie ses interactions avec de nombreuses protéines cibles.
Structure de la CaM
Structure générale
1. La structure de la CaM, longue de 148 acides aminés, comprend deux domaines globulaires approximativement symétriques, le domaine N-CaM (lobe N) et le domaine C-CaM (lobe C), contenant chacun :
Calmoduline
(Figure : vetopsy.fr) une paire de mains EF (EF hand) liant les ions Ca2+, les sites I et II étant situés dans le lobe N-terminal et les sites III et IV dans le lobe C-terminal,
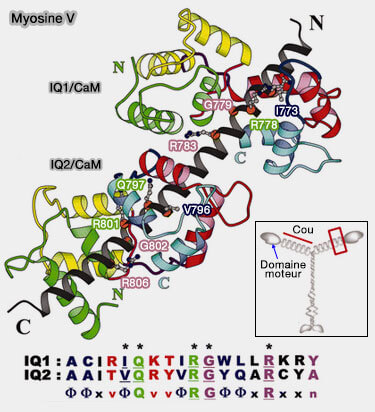
La région centrale flexible permet aux deux lobes de la calmoduline d'adopter différentes orientations et de reconnaître une grande diversité de protéines cibles (motifs de liaison à la calmoduline dont les domaines IQ).
Chaque main EF comporte une boucle de liaison au Ca2+ d'environ 12 acides aminés, capable de coordonner un ion Ca2+.
Les régions de liaison aux ions calcium sont situées dans les régions 21-32, 57-68, 94-105 et 130-141.
Ces régions sont situées entre deux hélices alpha dans les motifs EF-hand, les deux premières régions (21-32 et 57-68) sont d'un côté de la région du lien, les deux autres (94-105 et 130-141) sont de l'autre côté.
Main EF et pseudo-main EF
(Figure : vetopsy.fr)
2. Chez l'homme, une particularité remarquable est que trois gènes distincts, CALM1, CALM2 et CALM3, codent exactement la même protéine CaM de 148 acides aminés (The three calmodulin genes: territories defined? 2025).
Malgré cette identité protéique, ces gènes ne sont pas fonctionnellement équivalents : leurs régions régulatrices et leurs transcrits diffèrent, permettant une régulation distincte de leur expression.
Cette organisation explique également qu'une mutation hétérozygote d'un seul gène CALM puisse avoir des conséquences fonctionnelles importantes, en particulier sur la régulation Ca2+-dépendante de canaux ionique.
Changement conformationnel lié à la liaison du calcium
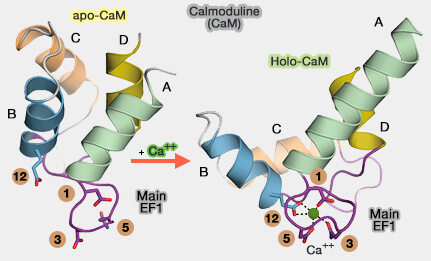
1. En l'absence de Ca2+, le motif hélice-boucle-hélice des mains EF est dans une conformation globulaire dite " fermée " (apo-CaM).
Ses résidus hydrophobes sont regroupés dans le noyau central.
Les résidus hydrophiles chargés exposés au solvant.
Apo-calmoduline et holo-calmoduline
(Figure : vetopsy.fr d'après Iwig et coll)
2. Lors de la fixation du calcium, les hélices se réorganisent en une conformation dite " ouverte " (holo-CaM).
Ces mutants expérimentaux, incapables de lier Ca2+ sur les deux mains EF du lobe N-terminal (CaM12 avec comme mutations D20A et D56A), les deux mains EF du lobe C-terminal (CaM34, D93A et D129A), ou les quatre mains EF, permettent d'étudier le rôle respectif des différents sites de liaison au Ca2+ de la calmoduline.
Le lobe C répond bien au Ca2+ entrant par le canal sur lequel réside la CaM correspondante (" sélectivité locale au Ca2+ ").
Le lobe N peut, dans certains canaux, nécessiter un signal Ca2+ beaucoup plus faible provenant de sources distantes (" sélectivité globale au Ca2+ ").
b. L'affinité de la CaM pour ses protéines cibles est augmentée lors de la liaison au Ca2+ et son affinité pour le Ca2+ est renforcée lors de la liaison de ses protéines cibles.
5. La dissociation des ions Ca2+ liés à l'extrémité N-terminale de la CaM précède souvent la dissociation de CaM de ses peptides cibles.
Motifs de liaison à la calmoduline
1. Les motifs de liaison à la calmoduline (calmodulin-binding motif) sont nombreux et variés bien qu'ils possèdent certaines caractéristiques communes.


 motifs de liaison à la calmoduline dont les domaines IQ).