Les myosines II sont des moteurs moléculaires formés de deux chaînes lourdes et de quatre chaînes légères, dont l'organisation structurale permet la production de force et l'assemblage en filaments.
Les myosines II comprennent de nombreuses isoformes dont les propriétés et la régulation sont adaptées aux fonctions des différents types cellulaires et des différents tissus ( fonctions des myosines II).
Structure de la myosine II
La molécule de myosine II est un hétérohexamère formé de six polypeptides :
L'organisation structurale de la myosine II a notamment été caractérisée par des clivages protéolytiques qui produisent plusieurs fragments encore couramment utilisés pour décrire la molécule.
Structure de la myosine II et clivages protéolytiques
(Figure : vetopsy.fr)La chymotrypsine clive la myosine II en méromyosine lourde (HMM ou Heavy Meromyosin), comprenant les deux têtes et la partie proximale de la queue, et en méromyosine légère (LMM ou Light Meromyosin), correspondant à la partie distale de la queue.
La papaïne clive la HMM en deux fragments S1 (Subfragment 1), comprenant chacun le domaine moteur, le cou et les chaînes légères associées, et un fragment S2 (Subfragment 2) correspondant à la partie proximale de la queue en coiled-coil.
Chaînes lourdes de la myosine II
Les chaînes lourdes des myosines II sont codées par plusieurs gènes et présentent de nombreuses isoformes.
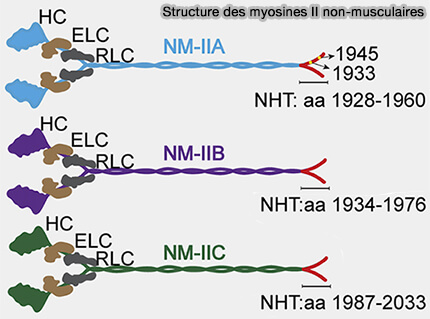
Dans les cellules non-musculaires, les myosines II comprennent trois isoformes principales, NMII-A, NMII-B et NMII-C, dont les chaînes lourdes sont respectivement codées par les gènes MYH9, MYH10 et MYH14.
Domaine moteur
Le domaine moteur forme la partie globulaire N-terminale de chaque chaîne lourde et porte le site de liaison aux microfilaments d'actine et le site de liaison et d'hydrolyse de l'ATP.
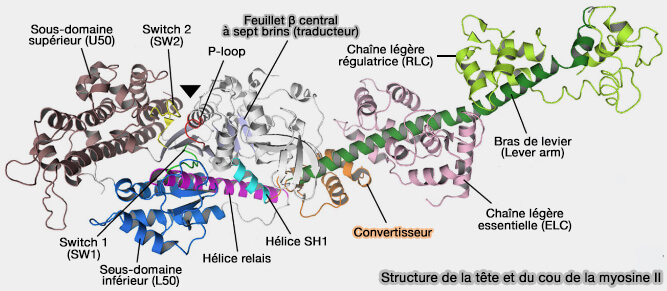
Sa structure s'organise autour d'un feuillets β (β sheet) central à sept brins, associé à plusieurs hélices α et éléments de connexion, appelé traducteur, qui participent à la transmission des changements de conformation entre le site nucléotidique, le site de liaison à l'actine et le bras de levier (Motor Proteins 2018).
1. Le sous-domaine N-terminal participe à l'organisation du site de liaison des nucléotides et aux changements de conformation du domaine moteur au cours du cycle ATPasique.
a. Cette interface comprend plusieurs boucles de surface, notamment la boucle 2 (loop 2), située dans L50, qui contribue à l'interaction avec l'actine.
b. U50 et L50 sont séparés par une grande fente associée à l'interface de liaison à l'actine.
Les changements de conformation de cette fente au cours du cycle mécanochimique participent à la modulation de l'affinité de la myosine pour l'actine.
c. La poche nucléotidique, située principalement à l'interface entre le sous-domaine N-terminal et U50, contient trois éléments conservés essentiels à la liaison et à l'hydrolyse de l'ATP :
une P-loop (Phosphate binding loop), séquence riche en glycine suivie d’une lysine conservée puis d’une sérine ou d'une thréonine, présente dans la majorité des ATPases et des GTPases), qui participe à la liaison du nucléotide.
deux commutateurs (Switch 1 et 2 : SW1 et SW2) qui entourent la P-loop et changent de conformation selon l'état nucléotidique, comme les commutateurs des protéines G, participant ainsi au couplage entre l'hydrolyse de l'ATP et les changements de conformation du domaine moteur (Catalytic strategy used by the myosin motor to hydrolyze ATP 2014).
Tête de la myosine II et chaînes légères
(Figure : vetopsy.fr adaptée d'après Kato et coll)
4. Le convertisseur, situé à l'extrémité du domaine moteur, peut être comparé à une douille dans laquelle vient se fixer le bras de levier du cou.
Le convertisseur peut effectuer une rotation d'environ 60°, dont l'amplitude varie selon l'état conformationnel et la myosine considérée, qui est transmise au bras de levier du cou.
Structure de la myosine
(Photographie : greatcourse.cnu.edu.cn)
Sa connexion asymétrique avec L50, notamment par l'hélice SH1 et l'hélice relais, permet de transmettre et d'amplifier les changements de conformation du domaine moteur provoqués par la liaison du nucléotide ou de l'actine.
Remarque : à l'extrémité N-terminale des chaînes lourdes des myosines II se trouve un petit domaine Myo N-term présentant un repliement de type SH3-like.
Situé immédiatement en amont du domaine moteur, il participe à l'organisation structurale de la tête et aux changements conformationnels associés au cycle mécanochimique.
Cou de la myosine II
1. Le cou est constitué par une hélice α de la chaîne lourde comportant deux motifs IQ (calmodulin-binding motif), motifs de 25 acides aminés comportant une séquence consensus de type [I,L,V]QxxxRGxxx[R,K].
Ces motifs se lient aux chaînes légères appartenant à la superfamille des des protéines à mains EF (EF hand) qui stabilisent et rigidifient cette hélice.
2. L'ensemble, hélice-α et chaînes légères associées, forme le bras de levier de la myosine II qui amplifie le mouvement généré par le domaine de moteur (Fifty Ways to Love Your Lever: Myosin Motors 1996).
Le nombre de motifs IQ détermine la longueur du bras de levier et par conséquent la taille de pas du moteur de myosine.
Cependant, les motifs IQ et les chaînes légères associées ne sont pas simplement des dispositifs mécaniques passifs, mais influencent également les propriétés chimio-mécaniques.
Structure des myosines II non-musculaires
(Figure : vetopsy.fr d'après Wang et coll)
1. Le coiled-coil présente une organisation périodique des charges et comporte notamment des répétitions d'environ 28 résidus qui participent aux interactions entre molécules de myosine et à leur assemblage en filaments.
Les chaînes légères (LC ou Light Chains), associées aux deux motifs IQ du cou des chaînes lourdes, appartiennent à la superfamille des protéines à mains EF (EF hand), et sont de deux types.
1. Les chaînes légères essentielles (ELC ou Essential Light Chains) sont liées au premier motif IQ, le plus proche du domaine moteur, et ont deux fonctions.
Elles forment autour de l'hélice-α de la chaîne lourde une sorte de " collier " qui contribue à stabiliser et rigidifier le bras de levier.
Elles modulent les propriétés mécanochimiques de la myosine II, notamment la cinétique du moteur.
2. Les chaînes légères régulatrices (RLC ou Regulatory Light Chains) sont liées au second motif IQ et participent à la régulation de l'activité de la myosine II.
Leur phosphorylation joue notamment un rôle majeur dans la régulation des myosines II des muscles lisses et des myosines II non-musculaires, en modulant leur activité ATPasique, leur interaction avec les microfilaments d'actine et leur assemblage en filaments.
Remarque : les ELC et les RLC existent sous plusieurs isoformes dont l'expression varie notamment selon le type de muscle, le type de fibre et le stade de développement.
Ces isoformes contribuent à adapter les propriétés mécaniques et cinétiques des différentes myosines II.
Assemblage des myosines II en filaments
Les molécules de myosine II s'assemblent par l'intermédiaire de leurs queues pour former des filaments bipolaires et leur organisation diffère notamment entre les cellules musculaires et non-musculaires.
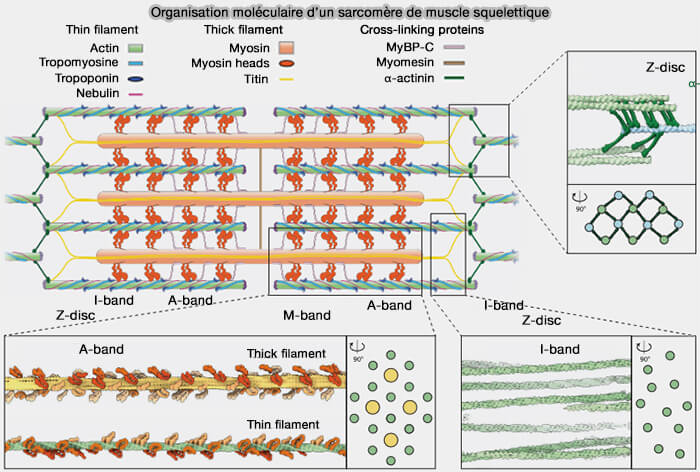
Dans les cellules musculaires squelettiques et cardiaques (cardiomyocytes), les myosines II s'assemblent en filaments épais qui, en relation avec les filaments fins constitués principalement de microfilaments d'actine, s'organisent en sarcomères au sein des myofibrilles et permettent la contraction par leur interaction avec l'actine.
Organisation moléculaire d’un sarcomère de muscle squelettique
(Figure d'après Wang et Raunser)
Dans les cellules musculaires lisses, les myosines II s'assemblent également en filaments qui interagissent avec les microfilaments d'actine pour assurer la contraction, mais sans organisation en sarcomères.
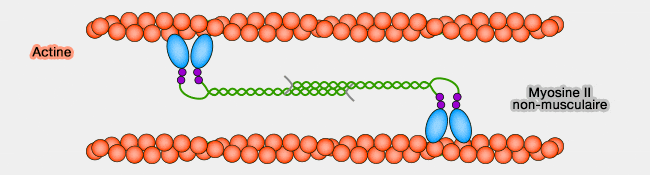
Dans les cellules non-musculaires, les myosines II s'assemblent en filaments bipolaires plus petits et dynamiques qui interagissent avec les microfilaments d'actine pour générer des forces contractiles et organiser notamment des faisceaux d'actomyosine.
Organisation bipolaire des myosines II non-musculaires
(Figure : vetopsy.fr)


 fonctions des myosines II).