Les filamines réticulent les microfilaments d'actine en réseaux tridimensionnels et assurent leur couplage avec de nombreux partenaires membranaires et de signalisation, participant ainsi à la mécanotransduction et à de nombreuses fonctions cellulaires.
Les filamines se distinguent des autres protéines de réticulation par leur architecture en V et leurs propriétés mécanosensibles, qui leur permettent d'adapter l'organisation du cytosquelette aux contraintes mécaniques.
Famille des filamines
Chez les mammifères, la famille des filamines comprend trois protéines homologues codées par trois gènes distincts.
1. La filamine A (FLNA), anciennement appelée ABP-280 ou filamine 1, est la filamine la plus abondante et la mieux caractérisée.
Elle présente une large distribution tissulaire et constitue :
une importante protéine de réticulation des microfilaments d'actine,
2. La filamine B (FLNB) présente également une large distribution tissulaire.
Très proche de FLNA par sa structure, elle participe à l'organisation du cytosquelette d'actine et à ses interactions avec les membranes et les complexes d'adhérence.
Elle joue notamment un rôle important au cours du développement et de la morphogenèse des tissus.
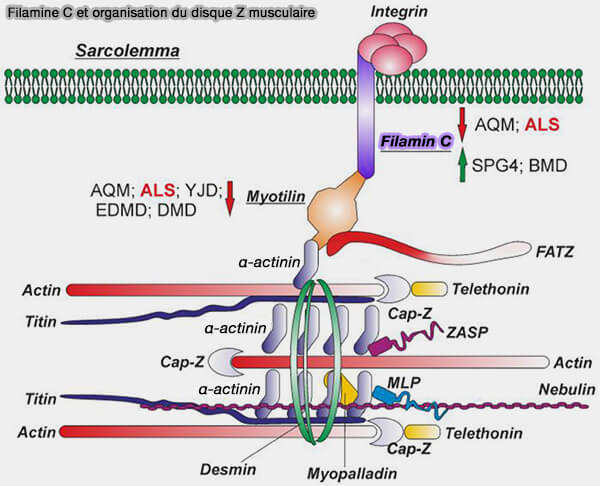
3. La filamine C (FLNC), également appelée filamine musculaire, est principalement exprimée dans les muscles squelettiques et cardiaque.
Elle participe à l'organisation et au maintien du cytosquelette des cellules musculaires et contribue à la résistance mécanique des myofibrilles, notamment au niveau des disques Z et de leurs connexions avec les structures membranaires.
Structure des filamines
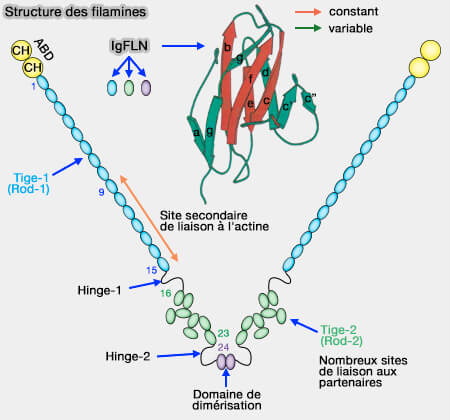
La filamine A (FLNA), la mieux caractérisée des filamines, est un homodimère allongé en forme de V dont chaque monomère, constitué de 2647 acides aminés, comprend plusieurs domaines.
Les répétitions IgFLN9 à IgFLN15 constituent un site secondaire d'interaction avec les microfilaments d'actine, qui complète l'ABD N-terminal et renforce la liaison de la filamine à ceux-ci.
b. La tige 2 (Rod 2) comprend les répétitions IgFLN16 à IgFLN23 et présente une organisation plus compacte.
Plusieurs de ses répétitions établissent des interactions intramoléculaires qui organisent cette région en paires de domaines.
Ces interactions entre répétitions peuvent masquer certains sites de liaison aux partenaires et leur modification sous l'effet de forces mécaniques participe aux propriétés mécanosensibles de la filamine.
Les deux monomères s'associent par leurs extrémités C-terminales, tandis que leurs régions N-terminales divergent.
Une seconde charnière, H2, sépare IgFLN23 de la répétition terminale IgFLN24.
Remarque : FLNB et FLNC possèdent une organisation générale très proche de celle de FLNA, avec un ABD N-terminal suivi de 24 répétitions IgFLN et un domaine de dimérisation C-terminal IgFLN24.
Chaque monomère du dimère de filamine possède un domaine ABD N-terminal qui se lie à un microfilament d'actine, ce qui permet la réticulation.
Réticulation de l'actine par la filamine
(Figure : vetopsy.fr)
1. La disposition en V des deux monomères et la flexibilité de leurs tiges permettent de relier des microfilaments présentant des orientations et des angles variables.
La filamine favorise ainsi, contrairement à l'α-actinine qui organise notamment des faisceaux de microfilaments relativement espacés, la formation de réseaux tridimensionnels réticulés, dans lesquels les filaments se croisent selon des angles variables.
2. La flexibilité de la filamine permet aux points de réticulation de s'adapter aux déplacements relatifs des microfilaments lorsque le réseau est soumis à des contraintes mécaniques.
Mécanosensibilité et mécanotransduction
1. Lorsque le réseau est soumis à une contrainte mécanique, les microfilaments se réorganisent et les molécules de filamine qui les relient sont progressivement mises sous tension (mécanosensibilité).
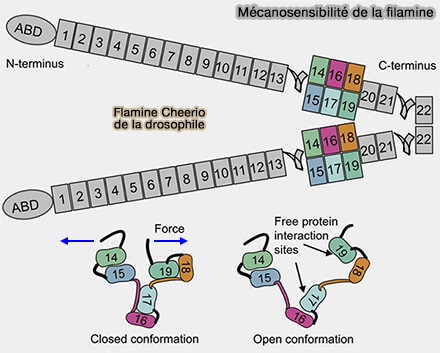
Cette région constitue une région mécanosensible (MSR, Mechanosensitive Region) dans laquelle certaines répétitions IgFLN masquent des sites de liaison portés par des répétitions voisines.
Mécanosensibilité de la filamine
(Figure : vetopsy.fr d'après Heklsmann et coll)
Des forces relativement faibles, de l'ordre de 2 à 5 pN, peuvent provoquer l'ouverture de cette structure et démasquer ces sites de liaison, modifiant ainsi les interactions de la filamine avec ses partenaires.
Par exemple, dans FLNA, la répétition IgFLN20 masque partiellement un site de liaison situé sur IgFLN21, la mise sous tension de la filamine peut déplacer cette interaction et rendre le site plus accessible à certains partenaires, notamment les intégrines.
Ces modifications permettent ainsi à la filamine d'adapter ses interactions avec ses partenaires aux forces mécaniques exercées sur le cytosquelette.
Remarque : la figure représente la filamine Cheerio de Drosophila, dont la région mécanosensible correspond aux répétitions IgFLN14–19 et le domaine de dimérisation à IgFLN22.
Leur numérotation diffère donc de celle de FLNA humaine (IgFLN16–23 et IgFLN24), mais le mécanisme de masquage et de démasquage mécanique des sites de liaison est conservé.
b. La filamine peut ainsi convertir une contrainte mécanique exercée sur le cytosquelette en modification des interactions protéiques et des voies de signalisation associées (mécanotransduction).
Elle participe de cette manière à la mécanotransduction, notamment au niveau des complexes reliant les microfilaments d'actine aux intégrines et à la membrane plasmique.
Rôles des filamines
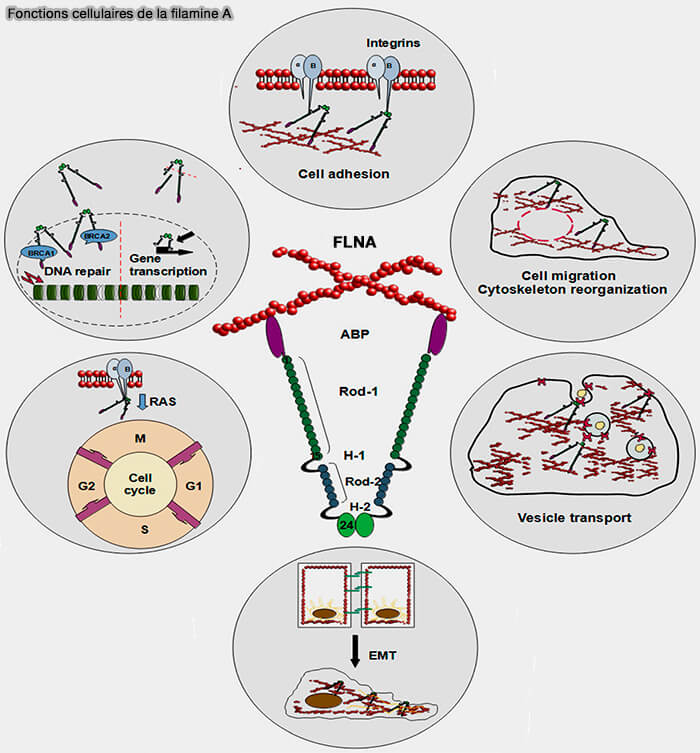
Outre leur rôle dans la réticulation des microfilaments d'actine, les filamines constituent des plateformes d'interaction reliant le cytosquelette à de nombreuses protéines membranaires et de signalisation.
Fonctions cellulaires de la filamine
(Figure : vetopsy.fr d'après Zawadka et coll)
1. Les filamines participent à l'organisation des réseaux tridimensionnels de microfilaments d'actine du cortex cellulaire et contribuent ainsi au maintien de la forme cellulaire et à la résistance de la cellule aux contraintes mécaniques.
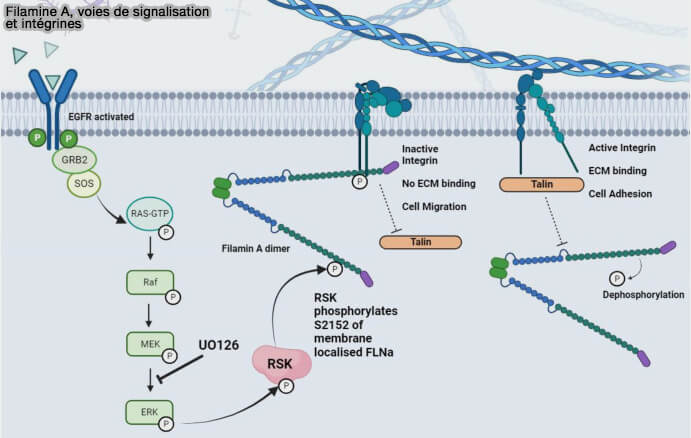
a. Sa liaison aux intégrines peut également réguler leur activation en entrant en compétition avec la taline pour certains sites de liaison.
La migfiline (FBLIM1), en se liant à FLNA, peut déplacer celle-ci des intégrines et favoriser ainsi leur interaction avec la taline et leur activation.
b. Ces interactions permettent aux filamines de participer à la transmission des forces entre la matrice extracellulaire et le cytosquelette ainsi qu'à la signalisation associée aux adhérences.
3. FLNA participe au remodelage du cytosquelette nécessaire à la migration cellulaire, notamment à l'organisation du réseau d'actine au front de migration et à la dynamique des adhérences.
Filamine A, voies de signalisation et intégrines
(Figure : vetopsy.fr d'après Schead et coll)
5. FLNA intervient dans le trafic et le recyclage de plusieurs protéines membranaires, participant notamment au contrôle de leur localisation et de leur disponibilité à la membrane plasmique.


 liste des partenaires dans The filamins Organizers of cell structure and function 2011).