


Enzymes
Groupe des
transférases (EC 2)
Protéine kinases
Sérine/thréonine kinases
CaMII kinase (CaMKII)
- Biochimie
- Chimie organique
- Bioénergétique
- Composition de la matière vivante
- Composés organiques
- Protides
- Acides nucléiques
- Glucides
- Lipides
- Enzymes
- Vue d'ensemble
- Classification des enzymes
- Coenzymes
- Hormones
- Composés inorganiques
- Composés organiques
- Transport membranaire
- Moteurs moléculaires
- Voies de signalisation

La CaMKII ou CaM II kinase, kinase sérine-thréonine appartenant à la famille des CaM kinases, est une CaM kinase majeure du signal calcique, organisée en holoenzyme multimérique et déclinée en plusieurs isoformes aux fonctions tissulaires spécialisées.
$\ce{ATP + protéine-Ser/Thr}$ $\leftrightharpoons$ $\ce{ADP + protéine-pSer/pThr}$
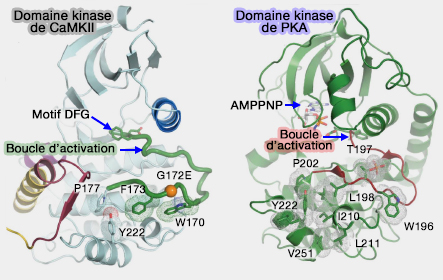
(Figure : vetopsy.fr d'après Chao et Stratton)
La CaMKII est une kinase très inhabituelle.
- La CaMKII représente entre 1 et 2 % des protéines cérébrales, concurrencées uniquement par des protéines du cytosquelette (The molecular basis of CaMKII function in synaptic and behavioural memory 2002).
- Elle s'autophosphoryle lors de l'activation par son association avec le complexe Ca2+/calmoduline, ce qui peut lui conférer une activité autonome persistant après la dissociation de ce complexe.
Le rôle général de CaMKII dans la signalisation dépendante du Ca2+/CaM peut ainsi être résumé par la séquence suivante :
Élévation de la concentration cytosolique de Ca2+ ➞ fixation du Ca2+ à la calmoduline ➞ liaison de Ca2+/CaM à la calcineurine ➞ levée de l'autoinhibition et activation de la calcineurine ➞ déphosphorylation de protéines cibles ➞ modulation de nombreuses fonctions cellulaires.
Isoformes de CaMKII
La CaMKII forme des holoenzymes multimériques, généralement constituées de 12 sous-unités, mais pouvant également en comporter 14.
- Chez les mammifères, quatre gènes codent les isoformes α, β, γ et δ, auxquelles s'ajoutent de nombreux variants issus de l'épissage alternatif.
- Les isoformes α et β prédominent dans l'encéphale.
1. CaMKIIα (CAMK2A) est l'une des principales formes de CaMKII.
- Elle est localisée à la densité postsynaptique.
- Des études chez des souris knock-out pour CaMKIIα ont montré une altération importante de la potentialisation à long terme (PLT) dans l'hippocampe.
2. CaMK2IIβ (CaMK2B) possède un site majeur d'autophosphorylation sur la T287.
- Elle fonctionne comme un module de ciblage ou d'amarrage.
- Plusieurs variants d'épissage de CaMKIIβ sont exprimés dans l'encéphale, leur distribution variant selon les régions, le stade de développement et l'espèce (Analysis of the CaMKIIα and β splice-variant distribution among brain regions reveals isoform-specific differences in holoenzyme formation 2018).
Remarque : dans le prosencéphale (télencéphale et diencéphale) adulte, le rapport d'expression CaMKIIα:CaMKIIβ est d'environ 3:1, alors qu'il est inversé dans le cervelet, où CaMKIIβ prédomine.
3. CaMKIIδ (CaMK2D) est largement exprimée dans les tissus non neuronaux et constitue une isoforme majeure de CaMKII dans le muscle cardiaque (Calcium-Dependent Signaling in Cardiac Myocytes 2022).
4. CaMKIIγ (CaMK2G) est largement exprimée et participe notamment à la signalisation des cellules musculaires lisses.
Structure de la CaMKII
La CaMKII forme des holoenzymes multimériques, généralement constituées de 12 sous-unités mais pouvant également en comporter 14.

(Figure : vetopsy.fr d'après Chao et Stratton)
Les sous-unités de CaMKII sont formées par (A mechanism for tunable autoinhibition in the structure of a human Ca2+/calmodulin-dependent kinase II holoenzyme 2011) :
- un domaine catalytique N-terminal,
- un domaine auto-inhibiteur ou régulateur,
- un domaine variable,
- un domaine d'association.

(Figure : vetopsy.fr d'après Chao et Straton)
1. Le domaine kinase catalytique, responsable du transfert du phosphate de l'ATP vers les résidus Ser ou Thr dans les substrats, comporte :
- un site de liaison à l'ATP,
- des régions participant à la reconnaissance et à la liaison des substrats.
2. Le domaine auto-inhibiteur (ou régulateur) est classiquement divisé en 3 régions (R1, R2 et R3).
- Il se lie au domaine catalytique et bloque sa capacité à phosphoryler les protéines.
- Il est déplacé par la liaison du module Ca2+/calmoduline.

(Figure : vetopsy.fr d'après Chao et Straton)
a. Un site majeur du segment régulateur est T286 dans CaMKIIα et le résidu homologue Thr287 dans les isoformes β, γ et δ, situé dans une hélice α formée par le segment régulateur.
- Cette hélice α bloque la liaison du substrat dans la structure auto-inhibée en occupant un sillon hydrophobe sur le domaine kinase.
- Sa phosphorylation se produit en trans, une sous-unité CaMKII activée phosphoryle le résidu T286/287 d'une sous-unité voisine au sein de l'holoenzyme.
b. Dans CaMKIIα, Thr305 et Thr306, situées dans la région de liaison à la CaM, constituent deux autres sites d'autophosphorylation.
3. Le domaine variable forme un lien flexible entre le domaine kinase/régulateur et le domaine d'association.
Sa longueur et sa composition varient selon les isoformes et les variants d'épissage de CaMKII.
4. Le domaine d'association, localisé à l'extrémité C-terminale, s'oligomérise avec les domaines d'association des autres sous-unités pour former un anneau central, autour duquel les domaines kinase sont disposés à la périphérie et reliés au cœur par les domaines variables flexibles (Structure of the CaMKIIδ/Calmodulin Complex Reveals the Molecular Mechanism of CaMKII Kinase Activation 2010).
Mécanismes d’activation et de régulation de CaMKII
La CaMKII est inactive dans les conditions de repos (CaMKII regulation in information processing and storage 2012 et Structural studies on the regulation of Ca2+/calmodulin dependent protein kinase II 2013).
1. En l'absence de Ca2+, l'accès du substrat au site de liaison du domaine catalytique est bloqué par le domaine auto-inhibiteur de la CaMKII.

(Figure : vetopsy.fr d'après Straton et Chao)
L'holoenzyme CaMKII, à l'état auto-inhibé, présente deux configurations.
- La première configuration est compacte : le domaine de liaison à la calmoduline interagit avec le centre de l'holoenzyme, ce qui le rend inaccessible à la calmoduline.
- L'autre configuration est étendue : le domaine de liaison à la calmoduline est plus exposé.
2. Lors de l'augmentation du Ca2+ cytosolique, la formation du complexe Ca2+/calmoduline active des sous-unités voisines de CaMKII, permettant la phosphorylation en trans de T286/287 d'une sous-unité par une autre.
a. La phosphorylation de T286/287 modifie la position des éléments R1 et R2 du domaine auto-inhibiteur, ce qui lève l'auto-inhibition et rend le domaine catalytique accessible aux substrats (New Therapeutic Targets in Cardiology: Arrhythmias and CaMKII 2013).

La phosphorylation de T286/287 confère à CaMKII une activité autonome qui peut persister après la diminution du Ca2+ cytosolique et la dissociation du complexe Ca2+/CaM.
b. L'organisation multimérique de l'holoenzyme favorise les interactions entre sous-unités voisines nécessaires à l'autophosphorylation (CaMKII Autonomy Is Substrate-dependent and Further Stimulated by Ca2+/Calmodulin 2010).
- La phosphorylation de T286/287 augmente fortement l'affinité de CaMKII pour la calmoduline, phénomène appelé " piégeage de la CaM ", et prolonge ainsi l'activation de la kinase.
- L'organisation multimérique et l'autophosphorylation permettent à CaMKII de décoder la fréquence des oscillations de Ca2+ en différents niveaux d'activité kinase (Nonlinear Decoding and Asymmetric Representation of Neuronal Input Information by CaMKIIα and Calcineurin 2013).
c. En outre, l'inhibition de la PP1 (protéine phosphatase 1) ralentit la déphosphorylation de CaMKII et favorise le maintien de son activité autonome.
3. La déphosphorylation de T286/287 réduit l'activité autonome de CaMKII et favorise son retour à l'état auto-inhibé.
Dans CaMKIIα, la phosphorylation de T305 et T306 inhibe la fixation de la calmoduline.
Fonctions de CaMKII
1. Les différentes isoformes de CaMKII sont impliquées dans :
- la sécrétion de neurotransmetteurs, par la modulation des canaux CaV présynaptiques et de la machinerie d'exocytose vésiculaire,
- la neurotransmission et l'organisation postsynaptique, notamment par les interactions de CaMKII avec des protéines de la densité postsynaptique et du cytosquelette (CaMKII: Claiming Center Stage in Postsynaptic Function and Organization 2014),
- la plasticité synaptique, en particulier la potentialisation à long terme (PLT), impliquée dans la mémoire et l'apprentissage,
- la transduction olfactive, où CaMKII activée par le complexe Ca2+ /CaM phosphoryle et inhibe l'adénylate cyclase de type III (ACIII ou ADCY3), participant ainsi au rétrocontrôle du signal olfactif,
- la régulation de l'homéostasie du Ca2+,
- la régulation de nombreuses voies de signalisation, notamment celles contrôlant la croissance, la prolifération, la différenciation et la survie cellulaires comme les voies MAPK/ERK, PI3K/Akt/mTOR et JAK/STAT (The emerging role of CaMKII in cancer 2015),
- la reprise de la méiose lors de la fécondation, où son activation par le complexe Ca2+/calmoduline participe à la levée du blocage de l'ovocyte en métaphase II par phosphorylation d'Emi2 et activation consécutive de l'APC/C (Anaphase-Promoting Complex/Cyclosome),
- la régulation de certaines réponses immunitaires, notamment de l'activité des lymphocytes T et des macrophages (Rewiring immune evasion in liver metastases: WNT11 as a central node — a mini review 2025),
- la régulation du transport de Cl- dans certains épithéliums, notamment par la modulation de canaux chlorure activés par le Ca2+ comme ANO1/TMEM16A.
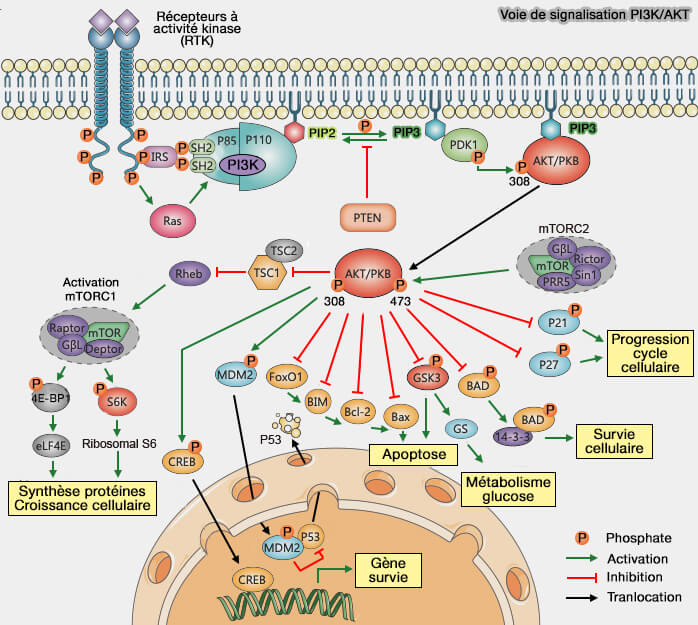

(Figure : vetopsy.fr d'après Anderson)
2. CaMKII phosphoryle de nombreuses protéines cibles, parmi lesquelles des canaux ioniques (Role for CaMKII in cardiovascular health, disease, and arrhythmia 2011) :
- les canaux calciques voltage-dépendants (Cav), par les sous-unités α1 et β (
 régulations des canaux Cav par les kinases),
- les canaux sodiques voltage-dépendants (Nav),
- les canaux potassiques voltage-dépendants.
3. CaMKII participe à la régulation de l'expression génique par la phosphorylation des facteurs de transcription. (Nuclear CaMKII Isoforms as Regulators of Transcription: From Developmental to Pathological Persistence 2025).
Remarque : une dérégulation de CaMKII est impliquée dans différentes pathologies :
- dans certaines maladies neurologiques comme la maladie d'Alzheimer ou le syndrome d'Angelman,
- dans certaines arythmies et pathologies cardiaques.
Retour vers les CAM kinases
BiochimieChimie organiqueBioénergétiqueProtidesGlucidesLipidesEnzymesKinasesProtéines kinasesLipides kinasesHydrolasesPeptidases/protéasesPhosphatasesEstérasesLipasesPhospholipasesATPasesGTPasesProtéines GPetites GTPasesFamille dynamineCoenzymesVitaminesHormonesComposés inorganiquesTransport membranaireMoteurs moléculaires