


Constituants cellulaires
Cytosquelette : microfilaments d'actine
Nucleation-Promoting Factors (NPF) : régulation
- Biologie cellulaire et moléculaire
- Constituants de la cellule
- Membrane plasmique
- Noyau
- Cytoplasme
- Hyaloplasme/cytosol
- Structure immergées dans le hyaloplasme
- Cytosquelette
- Vue d'ensemble et rôles
- microfilaments d'actine
- Structure de l'actine
- Polymérisation de l'actine
- Protéines associées à l'actine (Actin-Binding Proteins, ABP)
- Protéines de séquestration
- Protéines de nucléation
- Protéines d’élongation
- Protéines de coiffage
- Protéines de sectionnement et de dépolymérisation
- Protéines de stabilisation
- Protéines de réticulation
- Protéines motrices (myosines)
- Protéines assurant la liaison entre les microfilaments d'actine et la membrane plasmique
- Filaments intermédiaires
- Microtubules
- Proteasome
- Cytosquelette
- Morphoplasme : organites
- Matrice extracellulaire
- Reproduction cellulaire
- Biochimie
- Transport membranaire
- Moteurs moléculaires
- Voies de signalisation

La régulation des NPF (Nucleation Promoting Factor) contrôle l'activation spatio-temporelle du complexe Arp2/3 et la formation des réseaux ramifiés de microfilaments d'actine.
Les NPF (Nucleation Promoting Factor) permettent de coupler l'activation du complexe Arp2/3 aux signaux cellulaires et de contrôler ainsi où et quand se forment les réseaux ramifiés de microfilaments d'actine.
- Les NPF de type I sont principalement régulés par le contrôle de l'accessibilité de leur domaine VCA/WCA, ce qui permet d'adapter la polymérisation des microfilaments d'actine aux signaux et aux besoins de la cellule.
- Les NPF de type II, notamment la cortactine et HS1, sont abordés dans les chapitres consacrés à leurs interactions avec les microfilaments d'actine et à la stabilisation des réseaux ramifiés.
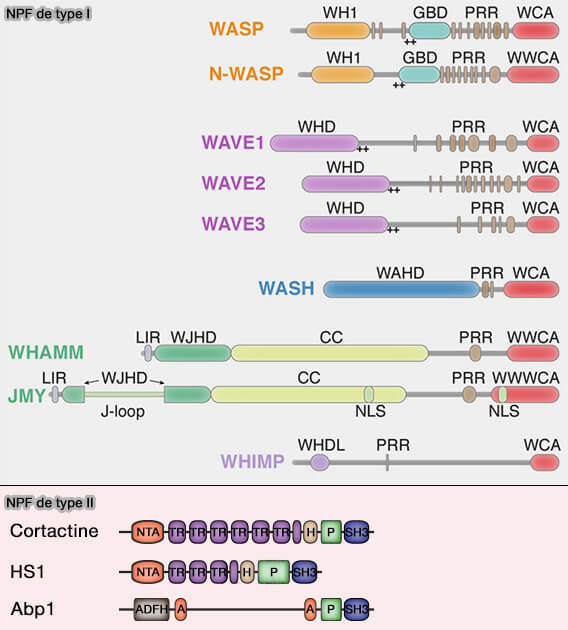
(Figure : vetopsy.fr adaptée d'après Kramer et coll)
NPF de type I : accès au domaine VCA/WCA
Chez les NPF de type I (famille WASP), l’activité dépend principalement de l’accessibilité du domaine VCA/WCA, qui peut être masqué ou séquestré dans l’état inactif.
WASP et N-WASP
Chez WASP et N-WASP, l’accès au domaine VCA/WCA est contrôlé par un mécanisme d’auto-inhibition dont la levée permet l’activation du complexe Arp2/3.
Auto-inhibition
Le domaine VCA/WCA des WASP est auto-inhibé par des interactions moléculaires avec des régions situées en amont du NPF (Generation of branched actin networks: assembly and regulation of the N-WASP and WAVE molecular machines 2010).

L'auto-inhibition des WASP par le domaine GBD est étudiée dans un chapitre spécial.
1. Cette auto-inhibition de VCA/WCA est dépendante :
- du domaine GBD (GTPase-Binding Domain), i.e. domaine CRIB (Cdc42/Rac-Interactive Binding) et la région auto-inhibitrice (AI),
- de hélice αG du domaine C du domaine VCA/WCA.
Dans l'état auto-inhibé, la région AI/IS du GBD interagit avec la face hydrophobe de l'hélice amphipathique αG de la région C (Wiskott-Aldrich Syndrome Protein: Roles in Signal Transduction in T Cells 2021).
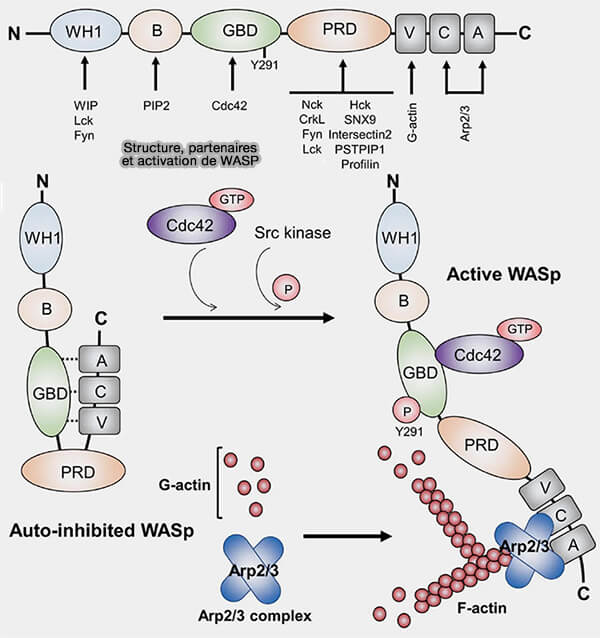
(Figure : vetopsy.fr d'après Ngoenkam et coll)
Activation par levée de l'auto-inhibition
L’activation de WASP/N-WASP repose sur la levée de leur auto-inhibition, qui rend le domaine VCA/WCA accessible et permet l’activation du complexe Arp2/3.
1. La liaison de Cdc42 sous sa forme Cdc42-GTP au domaine GBD/CRIB déstabilise l'interaction auto-inhibitrice AI/IS–αG et favorise l'exposition du domaine VCA/WCA (The nucleotide switch in Cdc42 modulates coupling between the GTPase-binding and allosteric equilibria of Wiskott–Aldrich syndrome protein 2005).
Le GBD établit notamment des contacts avec les régions Switch I et Switch II de Cdc42, dont la conformation dépend de l'état nucléotidique de la GTPase.
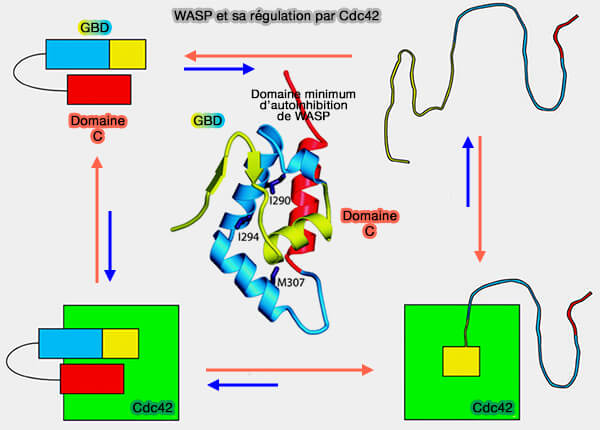
(Figure : vetopsy.fr d'après Leung et coll)
2. Le PI(4,5)P2/PIP2 participe également à la levée de l'auto-inhibition en se liant à la région B basique de WASP/N-WASP.
Cdc42-GTP et le PI(4,5)P2 peuvent ainsi agir en coopération pour déplacer l'équilibre conformationnel vers l'état actif et rendre le domaine VCA/WCA accessible.
3. Des protéines à domaine F-Bar comme Toca-1 (Transactivator Of Cytoskeleton Assembly 1), CIP4 (Cdc42-interacting protein 4) et FBP17 (Formin-Binding Protein 17) participent au couplage entre la déformation de la membrane et la polymérisation des microfilaments d'actine en recrutant notamment N-WASP par leur domaine SH3.
Elles interviennent en particulier au cours de l'endocytose clathrine-dépendante (CME) où elles participent à la déformation de la membrane et au bourgeonnement des vésicules (The Cdc42-interacting Protein-4 (CIP4) Gene Knock-out Mouse Reveals Delayed and Decreased Endocytosis 2009).
4. La dimérisation de plusieurs domaines VCA/WCA peut fortement augmenter leur affinité pour le complexe Arp2/3 et favoriser son activation.
Dans les conditions expérimentales étudiées, cette augmentation d'affinité peut atteindre environ 180 fois (Hierarchical Regulation of WASP/WAVE Proteins 2008).
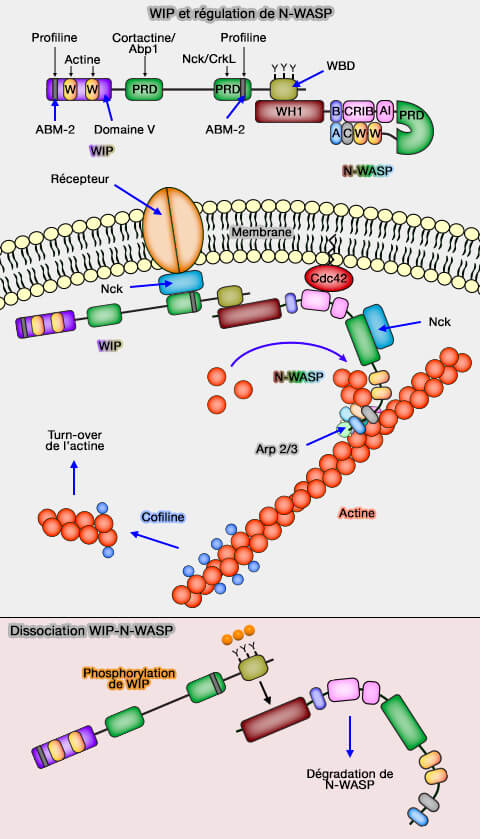
5. La disponibilité et l'activité de WASP/N-WASP dépendent également de leur association avec les protéines WIP, qui participent à leur stabilisation, à leur localisation et à leur régulation.
Stabilisation et régulation de WASP/N-WASP par les protéines WIP
Les WIP (WAS/WASL Interacting Protein) comprennent plusieurs membres (WIP: WASP-interacting proteins at invadopodia and podosomes 2012) :
- WIP,
- CR16 (Corticosteroids and Regional expression-16),
- WICH/WIRE (WIP- et CR16-homologous protein/WIP-related).
Les WIP se fixent sur le domaine WH1 des WASP.
Structure des WIP
Ces protéines contiennent plusieurs domaines (The Disordered Cellular Multi-Tasker WIP and Its Protein–Protein Interactions: A Structural View 2020).
1. Le domaine V (verprolin domain) contient 2 domaines WH2 (WASP homology 2) qui se lient à l'actine, ce qui facilite la stabilisation des microfilaments.
2. Des domaines ABM-2 (Actin-Based Motility 2), dont le nombre de 2 à 6 varie selon les membres de la famille WIP, se lient à la profiline.
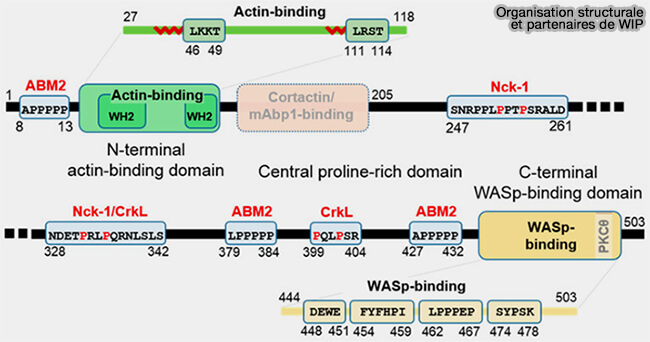
(Figure : vetopsy.fr d'après Sokolik et coll)
3. Le domaine riche en proline (PRD) contient plusieurs motifs qui se lient aux domaines SH3 de protéines partenaires, notamment la cortactine, Abp1 et les adaptateurs Nck ou CrkL.
4. Le domaine WBD (WASP-Binding Domain) se lie à WASP et à N-WASP.
Régulation des WASP par les WIP
1. Dans les cellules, WIP forme un complexe avec WASP et N-WASP par la liaison de son domaine WBD au domaine WH1 et contribue ainsi à leur stabilisation et à leur protection contre la dégradation par le protéasome.
a. La phosphorylation de WIP sur trois résidus tyrosine du domaine WBD (Y455, Y468 et Y475) favorise la dissociation du complexe WASP-WIP.
Cette phosphorylation peut notamment être catalysée par des tyrosine kinases de la famille Src et par Btk (Bruton's tyrosine kinase), qui appartient à la famille Te et et joue un rôle majeur dans la signalisation et le développement des lymphocytes B.
(Figure : vetopsy.fr)
b. La dissociation du complexe expose WASP à différents mécanismes de dégradation, ce qui réduit sa disponibilité pour la polymérisation des microfilaments d'actine :
- protéolyse dépendante de la calpaïne,
- ubiquitination conduisant à sa dégradation par le protéasome.

Vous pouvez lire : Tyrosine phosphorylation of WIP releases bound WASP and impairs podosome assembly in macrophages (2015) et Multifaceted role of the actin‐binding protein WIP: Promotor and inhibitor of tumor progression and dissemination (2025).
2. Après stimulation cellulaire, la levée de l'auto-inhibition de WASP/N-WASP et l'exposition du domaine VCA/WCA résultent de plusieurs mécanismes de régulation.
a. WIP interagit avec les adaptateurs CrkL ou Nck, qui participent au recrutement du complexe WIP-WASP/N-WASP vers la membrane plasmique.
b. Le recrutement membranaire favorise l'action de Cdc42-GTP sur le domaine GBD/CRIB et la levée de l'auto-inhibition décrite précédemment ;
Contrairement au WRC/WAVE, WASP/N-WASP n'est pas directement activé par Rac1.
c. WASP elle-même peut également être phosphorylée sur plusieurs résidus, ce qui module son activité après la levée de l'auto-inhibition.
- La tyrosine 291 (ou Y293 chez la souris) participe à la régulation de l'activité et de la stabilité de WASP et peut coopérer avec Cdc42 dans son activation (Phosphorylation of WASp is a key regulator of activity and stability in vivo 2009 et Tyrosine phosphorylation of WASP promotes calpain-mediated podosome disassembly 2012),
- Les sérines 483 et 484, situées dans le domaine VCA/WCA, peuvent augmenter son affinité pour le complexe Arp2/3 et favoriser la polymérisation de l'actine (Phosphorylation of the WASP-VCA Domain Increases Its Affinity for the Arp2/3 Complex and Enhances Actin Polymerization by WASP 2003).
(Figure : vetopsy.fr)
Remarque : la phosphorylation de Ser488 de WIP, située en amont du domaine WBD, par PKCθ en réponse à l'activation du récepteur des cellules T ne provoque pas la dissociation du complexe WIP-WASP, contrairement à ce qui avait été proposé initialement.
Interactions des WIP avec l'actine
WASP joue un rôle majeur dans la régulation du cytosquelette d'actine des cellules hématopoïétiques, notamment des lymphocytes B.
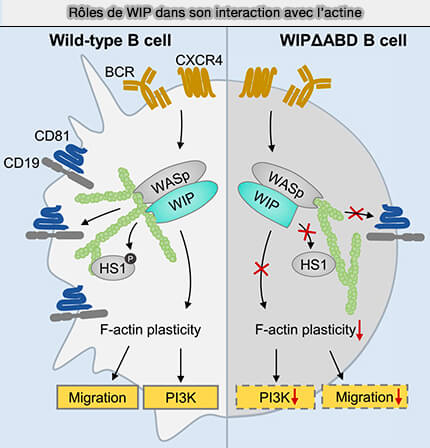
1. WIP se lie à WASP et le stabilise, mais interagit également directement avec l'actine.
Cette liaison à l'actine, indépendamment de la liaison à WASP, participe à la plasticité du cytosquelette d'actine dans les lymphocytes B (The Lack of WIP Binding to Actin Results in Impaired B Cell Migration and Altered Humoral Immune Responses 2018).
2. La liaison de WIP à l'actine influence la phosphorylation du CD19 et la signalisation PI3K.
- Lorsque cette liaison est altérée, comme dans les cellules B mutantes WIPΔABD, la réorganisation des microfilaments d'actine et la localisation de HS1/HCSL1 (Hematopoietic Cell-Specific protein-1) sont perturbées (Hematopoietic cell-specific lyn substrate (HCLS1 or HS1): A versatile actin-binding protein in leukocytes 2018).
Cette altération de la plasticité du cytosquelette d'actine réduit la chimiotaxie et la migration cellulaires et contribue à modifier les réponses immunitaires humorales.
WAVE
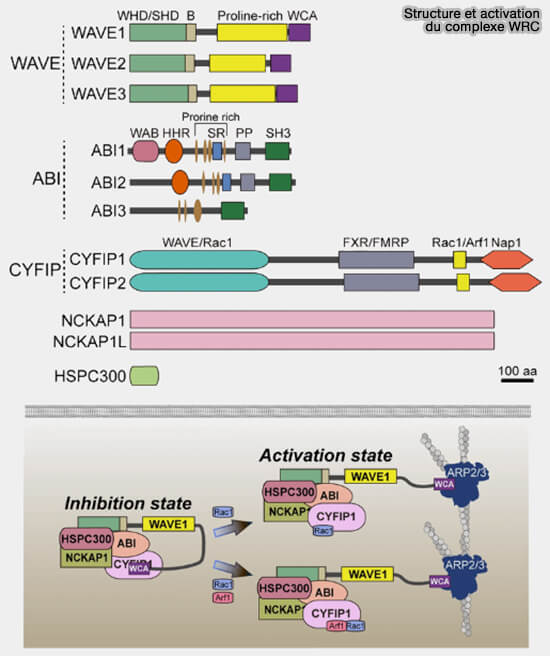
1. Chez les WAVE, la protéine WAVE est maintenue dans un état inactif au sein du complexe WRC (WAVE Regulatory Complex), notamment par des interactions avec Sra1/CYFIP et Nap1/NCKAP qui séquestrent son domaine WCA (The WAVE Regulatory Complex is Inhibited 2009).
Au contraire, chez WASP/N-WASP, l'auto-inhibition est intramoléculaire : la région auto-inhibitrice AI/IS du domaine GBD masque le domaine VCA/WCA en interagissant avec l'hélice αG de sa région C (Orchestration of synaptic functions by WAVE regulatory complex-mediated actin reorganization 2023).
(Figure : vetopsy.fr d'après Ah Han et coll)
2. L'activation du WRC résulte de l'intégration de plusieurs signaux qui agissent de manière coopérative (WAVE signalling: from biochemistry to biology 2006).
- La liaison de Rac1-GTP sur Sra1/CYFIP participe au recrutement membranaire et à l'activation du WRC, favorisant la libération du domaine WCA de WAVE et l'activation du complexe Arp2/3 (Activation of the WAVE complex by coincident signals controls actin assembly 2009 et The WAVE Regulatory Complex is Inhibited 2009).
- Nap1/NCKAP1 peut également interagir avec les domaines SH3 de l'adaptateur Nck, ce qui contribue au recrutement du WRC vers certains sites membranaires où la polymérisation des microfilaments d'actine doit être activée.
- les phosphoinositides membranaires participent également à cette régulation, en particulier le PI(3,4,5)P3 ou PIP3 qui favorise le recrutement et l'activation de WAVE à la membrane plasmique.
3. L'activité de WAVE et du WRC est également modulée par différentes phosphorylations, qui peuvent favoriser ou inhiber l'activation de WAVE selon les sites phosphorylés et les kinases impliquées (The WAVE complex in developmental and adulthood brain disorders 2025).
Retour aux NPF ou au complexe Arp/2/3
Biologie cellulaire et moléculaireMembrane plasmiqueNoyauCytoplasmeMitochondriesSystème endomembranaireRéticulum endoplasmiqueAppareil de GolgiEndosomesLysosomesPeroxysomesProtéasomesCytosqueletteMicrofilaments d'actineFilaments intermédiairesMicrotubulesReproduction cellulaireBiochimieTransport membranaire Moteurs moléculairesVoies de signalisation