


Système limbique
Formation parahippocampique
Cortex entorhinal (EC)
Histologie des couches superficielles (I, II et III)
- Système nerveux
- Système nerveux central
- Système nerveux périphérique
- Neurophysiologie

Les couches superficielles du cortex entorhinal (I, II et III) présentent une organisation neuronale spécifique, avec des différences cytoarchitecturales entre les régions médiale (MEC) et latérale (LEC).
La structure du cortex entorhinal est considérée comme une transition entre l'allocortex (à trois couches) et le néocortex (à 6 couches).
Le cortex entorhinal est divisé en deux régions ( architecture fonctionnelle du EC) :

Ce chapitre est très largement inspiré par : Architecture of the Entorhinal Cortex A Review of Entorhinal Anatomy in Rodents with Some Comparative Notes (2017).
Couches superficielles
(Figure : vetopsy.fr d'après Witter et Mott)
Couche I
La couche I est surtout formée de fibres orientées transversalement, constituant une bande dense.
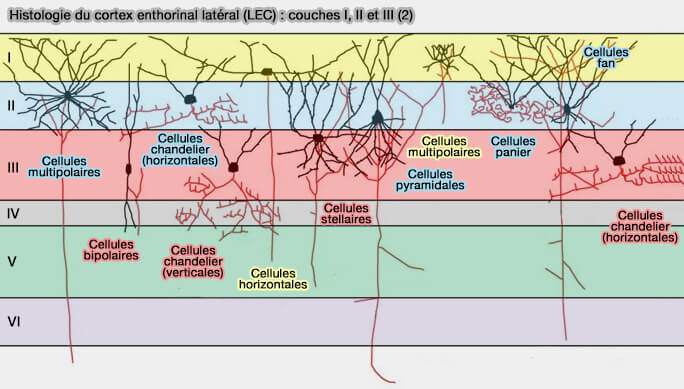
Elle contient peu de neurones, parmi lesquels des interneurones GABAergiques de morphologie horizontale ou multipolaire.
Couche II
Cellules principales
La couche II contient deux grandes populations de cellules principales, distinguées par l'expression préférentielle de deux protéines :
- les unes exprimant la calbindine,
- les autres exprimant la réeline, du nom de la démarche titubante (reeling gait) des souris Reeler, déficientes en cette protéine cérébrale.
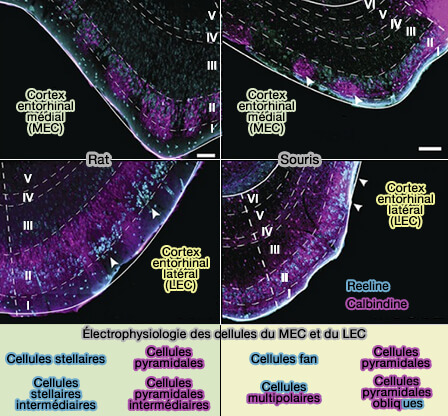
1. Dans le MEC, les cellules exprimant la calbindine forment des îlots (patches), tandis que celles exprimant la réeline occupent davantage les espaces intermédiaires.
2. Dans le LEC, les cellules exprimant la réeline sont regroupées dans la couche IIa, et les cellules exprimant la calbindine dans la couche IIb.
Cette distinction est importante car :
- les cellules exprimant la réeline projettent principalement sur le gyrus denté et CA3,
- les neurones positifs à la calbindine se projettent sur plusieurs autres cibles, notamment CA1 et l'EC controlatéral, le bulbe olfactif et le cortex piriforme (Local and Distant Input Controlling Excitation in Layer II of the Medial Entorhinal Cortex 2016 et Island Cells Control Temporal Association Memory 2014).
3. Les deux groupes cellulaires définis chimiquement sont composés de plusieurs sous-groupes morphologiques qui peuvent être distingués en fonction des caractéristiques somatiques et dendritiques.
(Figure : vetopsy.fr d'après Canto et coll)
Dans le cortex entorhinal médial (MEC)
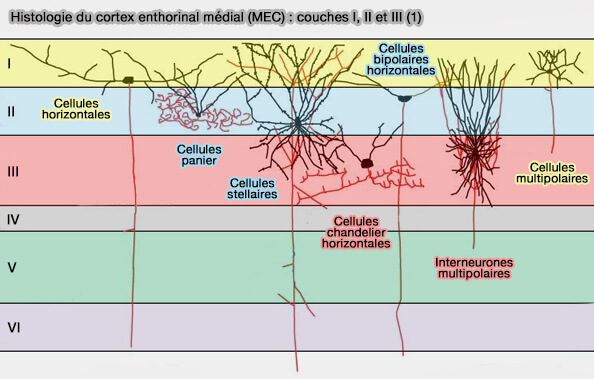
1. Dans le MEC, on trouve surtout des cellules étoilées (SC) qui expriment généralement la réeline.
Ces grandes cellules sont assez différentes des cellules correspondantes de la couche II des régions corticales adjacentes, à l'exception de celles du parasubiculum, dont elles se distinguent par une coloration de Nissl moins intense, du nom du psychiatre et chercheur allemand Franz Alexander Nissl (1860-1919).
(Figure : vetopsy.fr d'après Canto et coll)
2. Les cellules pyramidales (PC), moyennes et grandes, généralement positives pour la calbindine.
Un faible pourcentage de ces PC se projette sur la couche I du MEC controlatérale (Local and Distant Input Controlling Excitation in Layer II of the Medial Entorhinal Cortex 2016).
3. On trouve aussi des cellules étoilées (SC) intermédiaires (IMSC) et pyramidales intermédiaires (IMPC) qui peuvent exprimer la réeline et la calbindine.
Dans le cortex entorhinal latéral (LEC)
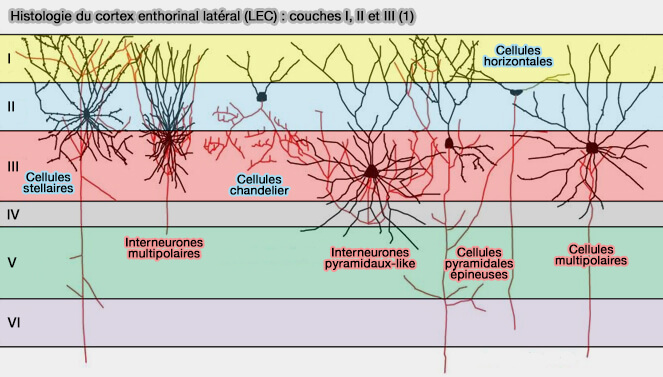
1. Dans le LEC, les cellules en éventail (fan cells) sont ainsi nommées en raison de la disposition de leurs dendrites, qui s'étalent en éventail à partir du corps cellulaire (Fan Cells in Layer 2 of the Lateral Entorhinal Cortex Are Critical for Episodic-like Memory 2020).
- Ce sont des neurones excitateurs de la couche IIa dont les dendrites s'étendent principalement dans la couche I.
- Elles expriment généralement la réeline.
(Figure : vetopsy.fr d'après Canto et coll)
2. Les cellules pyramidales classiques (PC), moyennes et grandes, sont généralement positives pour la calbindine.
3. Les cellules obliques (ObPC) et les cellules multipolaires correspondent aux cellules intermédiaires.
Interneurones
L'EC, comme le néocortex en général, contient trois grandes populations d'interne d'interneurones GABAergiques.
Cette classification est surtout établie chez les rongeurs et les trois groupes ne sont pas nécessairement homogènes sur le plan morphologique ou fonctionnel.
(Figure : vetopsy.fr d'après Canto et coll)
1. Les interneurones exprimant la parvalbumine (PV), protéine fixant le calcium, constituent une population importante d'interneurones GABAergiques (environ 50 %) du cortex entorhinal :
- des cellules à panier (basket cell) à décharge rapide (Target-Selectivity of Parvalbumin-Positive Interneurons in Layer II of Medial Entorhinal Cortex in Normal and Epileptic Animals 2016),
- des cellules chandelier (The chandelier cell, form and function 2014 et Chandelier Cells in Functional and Dysfunctional Neural Circuits 2016).
2. Les interneurones exprimant la somatostatine (SOM) constituent une autre population importante d'interneurones GABAergiques (environ 30%) et sont généralement des cellules à décharge à seuil bas ou low threshold spiking neurons (Recurrent inhibitory circuitry as a mechanism for grid formation 2013).
(Figure : vetopsy.fr d'après Hafting et coll)
3. Les interneurones expriment le récepteur sérotoninergique ionotropique 5HT3a comprennent différentes populations, caractérisées notamment par l'expression de :
- la cholécystokinine (CCK), notamment dans certaines cellules à panier,
- la calrétinine,
- le VIP.
Microcircuits locaux
Microcircuit local du MEC
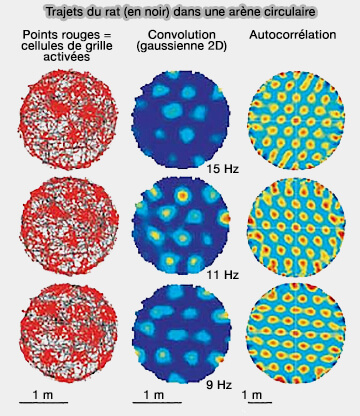
Les cellules de grilles sont des neurones impliqués dans la représentation spatiale, dont l'activité caractéristique peut être observée aussi bien dans des cellules étoilées (SC) que dans des cellules pyramidales (Membrane potential dynamics of grid cells 2013 et Cellular mechanisms of spatial navigation in the medial entorhinal cortex 2013 et Pyramidal and Stellate Cell Specificity of Grid and Border Representations in Layer 2 of Medial Entorhinal Cortex 2014).
La majorité des cellules grilles se trouvent dans la couche II du cortex enthorinal médial (MEC), mais sont aussi présentes, en bien moindre nombre, dans les autres couches (Microstructure of a spatial map in the entorhinal cortex 2005 et Conjunctive Representation of Position, Direction, and Velocity in Entorhinal Cortex 2006).
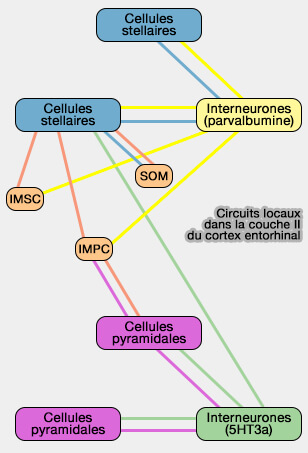
1. Dans les microcircuits étudiés de la couche II du MEC, les cellules étoilées (SC) présentent peu ou pas de connexions excitatrices monosynaptiques entre elles.
- La communication entre les SC s'effectue notamment par l'intermédiaire d'un interneurone inhibiteur, dans un mécanisme par lequel l'activation d'une ou plusieurs SC évoque des courants inhibiteurs disynaptiques dans les SC voisines.
- Le lien disynaptique fonctionnel réciproque qui illustre le principe de base du microcircuit des cellules étoilées est médié par des interneurones à décharge rapide exprimant la parvalbumine (Parvalbumin interneurons provide grid cell–driven recurrent inhibition in the medial entorhinal cortex 2014 et Target-Selectivity of Parvalbumin-Positive Interneurons in Layer II of Medial Entorhinal Cortex in Normal and Epileptic Animals 2016).
(Figure : vetopsy.fr d'après Witter et Mott)
2. Les cellules pyramidales participent également à des circuits inhibiteurs disynaptiques, mais font intervenir une population hétérogène d'iinterneurones exprime le récepteur sérotoninergique ionotropique 5HT3a (Local and Distant Input Controlling Excitation in Layer II of the Medial Entorhinal Cortex 2016).
3. Comme les interactions synaptiques entre les cellules stellaires et pyramidales sont faibles, les deux populations forment des sous-circuits relativement distincts dans la couche II du MEC.
- Les informations relayées au gyrus denté par les cellules stellaires exprimant la réeline empruntent ainsi un circuit différent de celui des cellules pyramidales.
- Les informations relayées par les cellules pyramidales exprimant la calbindine sont dirigées vers d'autres cibles.
Toutefois, les deux réseaux peuvent communiquer par l'intermédiaire de certaines cellules intermédiaires, en particulier les cellules pyramidales intermédiaires (IMPC), qui établissent des connexions synaptiques avec les cellules pyramidales et les cellules stellaires.
Microcircuit local du LEC
1. Le cortex entorhinal latéral (LEC) possède une organisation fonctionnelle différente de celle du MEC.
- Les cellules grilles, caractéristiques du MEC, n'y ont pas été identifiées comme une population comparable.
- Toutefois, cette différence ne permet pas de conclure à l'absence de circuits inhibiteurs disynaptiques dans le LEC.
2. Cependant, le LEC contient des cellules en éventail (fan cells), qui présentent certaines similitudes morphologiques avec les cellules étoilées (SC) du MEC, ainsi que des cellules pyramidales.
Des connexions excitatrices directes entre cellules en éventail ont été décrites, mais elles semblent peu fréquentes.
3. Comme dans le MEC, les circuits locaux du LEC font intervenir différentes populations d'interneurones GABAergiques dont ceux exprimant le récepteur sérotoninergique ionotropique 5HT3a.
Leur organisation et leurs connexions diffèrent cependant de celles observées dans le MEC.

Les neurones de la couche II du cortex entorhinal sont particulièrement vulnérables aux altérations associées au vieillissement et à certaines maladies neurodégénératives, dont la maladie d'Alzheimer (Selective Vulnerability of Neurons in Layer II of the Entorhinal Cortex during Aging and Alzheimer's Disease 2010).
Couche III
Cellules principales
La couche III a été moins étudiée que la couche II et présente une organisation neuronale encore imparfaitement caractérisée.
(Figure : vetopsy.fr d'après Koganezawa et coll)
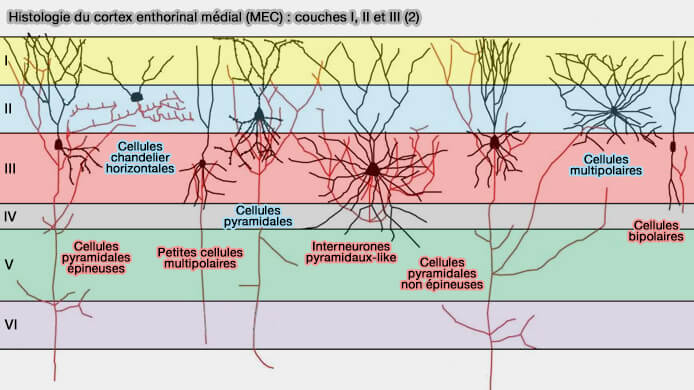
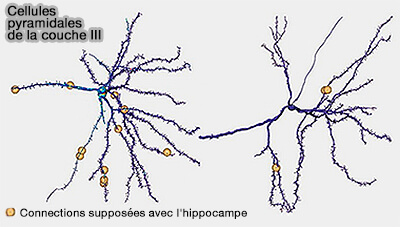
1. Dans le MEC et le LEC, la couche III contient des cellules pyramidales excitatrices épineuses (Anatomical Organization and Spatiotemporal Firing Patterns of Layer 3 Neurons in the Rat Medial Entorhinal Cortex 2015).
Dans le MEC, cette population présente une organisation relativement homogène.
a. Ces neurones établissent des projections :
- homolatéralement vers CA1 et le subiculum,
- controlatéralement vers des régions hippocampiques et entorhinales.
b. Dans le MEC, environ 40 % des neurones identifiés comme projetant vers le MEC controlatéral étaient également marqués par une injection de traceur dans l'hippocampe homolatéral, indiquant que certains neurones possèdent des projections vers les deux régions (Local and Distant Input Controlling Excitation in Layer II of the Medial Entorhinal Cortex 2016).
2. La couche III contient également une population de cellules pyramidales non épineuses, dont les axones peuvent rejoindre le faisceau angulaire.
Le faisceau angulaire est un ensemble de fibres situé dans la région ventrolatérale de la corne temporale du ventricule latéral qui comprend :
- la voie perforante, entrée principale qui relie le cortex entorhinal à la formation hippocampique, en particulier au gyrus denté,
- plusieurs autres fibres interconnectant le cortex entorhinal, le gyrus parahippocampique et les régions associées.
3. La couche III contient également des cellules étoilées (SC), présentant des morphologies dendritiques variées. Leurs axones peuvent rejoindre la substance blanche et émettre des collatérales dans la couche III et la couche IV (lamina dissecans).
Interneurones
La couche III contient une grande variété d'interneurones GABAergiques, présentant des morphologies multipolaires, pyramidales ou bipolaires.
Ils expriment plusieurs marqueurs moléculaires comme :
- la somatostatine,
- la calbindine,
- le VIP,
- la substance P (Hyperexcitability, Interneurons, and Loss of GABAergic Synapses in Entorhinal Cortex in a Model of Temporal Lobe Epilepsy 2006).
Les microcircuits de la couche III semblent faire intervenir des connexions monosynaptiques entre certains interneurones et les neurones principaux.