L'inactivation dépendante du Ca2+ (CDI, Calcium-Dependent Inactivation) est un mécanisme de rétrocontrôle par lequel l'entrée de Ca2+ à travers certains canaux CaV favorise leur propre inactivation.
Vue d'ensemble
1. La calmoduline (CaM) associée au canal agit comme capteur de l'augmentation locale ou globale du Ca2+ et déclenche les changements conformationnels responsables de la CDI.
La CDI constitue donc une rétroaction dépendante du Ca2+, tandis que la VDI résulte de changements conformationnels du canal dépendant du voltage, indépendamment de la liaison du Ca2+ à la calmoduline (modulations directes des CaV par les sous-unités β).
Motifs de liaison à la calmoduline des CaV
(Figure : vetopsy.fr d'après Mruc)
1. Au repos, l'apo-calmoduline (sans ions Ca2+) est préassociée au canal.
Le lobe C de l'apo-CaM interagit avec le domaine IQ de l'extrémité C-terminale des CaV.
Le lobe N semble interagir plus faiblement avec le domaine PreIQ ou PCI (proximal Ca2+-inactivation), situé en amont, contenant deux mains EF vestigiales, qui ne possèdent pas les résidus acides essentiels pour la liaison au Ca2+.
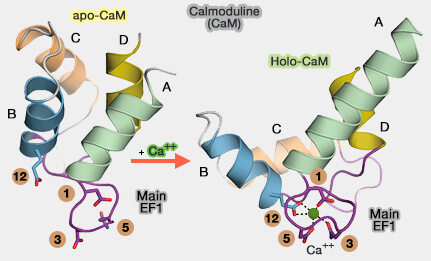
Apo-calmoduline et holo-calmoduline
(Figure : vetopsy.fr d'après Iwig et coll)
2. Lors d'une élévation du Ca2+ intracellulaire, la CaM, ancrée au canal, se lie au Ca2+, ce qui favorise un changement de conformation du complexe C-terminus/CaM et donne lieu à une CDI (changement conformationnel lié à la liaison du calcium).
Le canal complètement inactivé correspond à la fois à la liaison de deux ions Ca2+ sur le lobe C ET de deux ions Ca2+ sur le lobe N de la CaM (ICN).
3. Des configurations partiellement inactivées correspondent à des liaisons du Ca2+ à un seul des deux lobes de la CaM :
soit sur le lobe C (IC),
soit sur le lobe N (IN).
a. Le lobe C de la CaM interagit avec des régions de l'extrémité C-terminale CaV.
Quand le Ca2+ se lie au lobe N, celui-ci se détache de la région PCI de l'extrémité C-terminale du CaV1.3 pour interagir avec le domaine NSCaTE de l'extrémité N-terminale et provoquer une inactivation partielle (IN).
Quand le Ca2+ se lie au lobe C, celui-ci quitte le domaine IQ pour interagir avec la région PCI, en recrutant le domaine IQ dans un complexe tripartite, et provoquer une inactivation partielle (IC).
Quand le Ca2+ se lie aux lobes N et C, les deux réorganisations se produisent simultanément, conduisant à l'état ICN correspondant à l'inactivation par les deux lobes de la CaM.
CDI et isoformes des CaV
La CDI est présente dans les canaux CaV1 et CaV2, mais ses propriétés diffèrent selon les isoformes et selon la manière dont la CaM détecte l'augmentation du Ca2+ intracellulaire.
Inactivation CaM-dépendante (CDI)
(Figure : vetopsy.fr d'après Simms et Zamponi)
De façon générale, la CDI des CaV1, est davantage sensible au Ca2+ local, tandis que celle des CaV2 fait intervenir une détection plus globale du Ca2+, avec des différences selon les isoformes et le lobe de la CaM impliqué.
Le lobe C de la CaM détecte préférentiellement le Ca2+ local entrant par le canal, tandis que le domaine NSCaTE de l'extrémité N-terminale confère également au lobe N une sensibilité locale au Ca2+.
2. La CDI de CaV1.3 présente des composantes distinctes dépendant des lobes N et C de la CaM.
Le lobe C répond préférentiellement à l'entrée locale de Ca2+ par le canal, tandis que la présence du domaine NSCaTE permet également au lobe N de répondre au Ca2+ local.
a. La partie distale de l'extrémité C-terminale du canal comprend un domaine régulateur appelé CTM (C-terminal modulator) ou ICDI (Inhibitor of Ca2+-Dependent Inactivation).
Cette interaction entre les régions C-terminales distale et proximale modifie l'interaction de la CaM avec le domaine IQ et inhibe ainsi fortement la CDI.
CaBP4 se lie au domaine IQ de CaV1.4 comme la CaM mais selon des interactions structurales différentes.
Cette liaison de CaBP4 au domaine IQ peut s'opposer à la régulation du canal par la CaM et contribuer ainsi à supprimer la CDI.
CaBP4 et CaM et liaison au domaine IQ
(Figure : vetopsy.fr d'après Park et coll)
c. La faible inactivation de CaV1.4 permet de maintenir une entrée prolongée de Ca2+ aux potentiels dépolarisés, indispensable à la libération tonique de glutamate par les photorécepteurs et les cellules bipolaires de la rétine.
4. Les canaux CaV2 présentent également une régulation dépendante du Ca2+ par la calmoduline, avec des propriétés différentes de celles des canaux CaV1.
a. La régulation des CaV2 dépend différemment des deux lobes de la CaM.
Le lobe N intervient principalement dans la CDI et répond préférentiellement à une élévation plus globale du Ca2+ intracellulaire.
Le lobe C détecte préférentiellement le Ca2+ local entrant à proximité du canal.
b. La CaM interagit avec le domaine IQ de l'extrémité C-terminale des CaV2 selon une organisation différente de celle observée pour CaV1.2.
Cette orientation opposée modifie la position respective des lobes N et C de la CaM par rapport au domaine IQ et, par conséquent, les interactions que chacun d'eux peut établir avec les régions régulatrices du canal.
Dans CaV1.2, le lobe C joue un rôle majeur dans la CDI, tandis que dans les CaV2 le lobe N intervient principalement dans la CDI.
Dans CaV2.1, le lobe C participe au contraire à la CDF.
Facilitation dépendante du Ca2+ (CDF)
La facilitation dépendante du Ca2+ (CDF, Calcium-Dependent Facilitation) est un mécanisme de rétrocontrôle par lequel l'augmentation du Ca2+ intracellulaire, détectée par la calmoduline (CaM), augmente transitoirement l'activité de certains canaux CaV au cours d'activations répétées.
Comme la CDI, la CDF constitue donc une rétroaction du Ca2+ sur les canaux CaV, mais elle augmente leur activité au lieu de favoriser leur inactivation.
Les mécanismes moléculaires responsables de cette facilitation diffèrent cependant selon les types de canaux.
a. Au cours de dépolarisations répétées, l'augmentation du Ca2+ intracellulaire active la CaM, qui à son tour active la CaMKII (Ca2+/calmodulin-dependent protein kinase II).
Les CAM kinases et en particulier CAMKII sont étudiées dans des pages spécifiques.
La CDF de CaV1.2 peut contribuer à l'adaptation du courant calcique à l'augmentation de la fréquence cardiaque et ainsi participer à la relation force-fréquence du myocarde.
b. La CaM peut également participer directement à la CDF de CaV1.2 par son interaction avec le domaine IQ de l'extrémité C-terminale du canal.
La liaison du Ca2+ à la CaM préassociée au canal provoque une réorganisation de ses interactions avec le domaine IQ pouvant favoriser l'état facilité du canal.
c. La CDF s'oppose fonctionnellement à la CDI : la première augmente transitoirement l'activité de CaV1.2, tandis que la seconde limite l'entrée de Ca2+.
2. Les canaux CaV1.3 présentent également une CDF de la CaM et de la CAMKII, mais selon un mécanisme distinct de celui de CaV1.2.
a. Contrairement à la CDI de CaV2.1, qui dépend principalement du lobe N de la CaM et répond à une augmentation plus globale du Ca2+, la CDF dépend du lobe C et peut être déclenchée par l'entrée locale de Ca2+ à travers le canal lui-même (Elementary Mechanisms Producing Facilitation of Cav2.1 (P/Q-type) Channels 2007).
Cette régulation permet une transmission efficace au début d'une stimulation auditive répétée, puis une diminution progressive de la réponse lorsque la stimulation se prolonge, contribuant ainsi à l'adaptation de la transmission synaptique aux caractéristiques temporelles des sons.
c. Dans les cellules de Purkinje du cervelet, les canaux CaV2.1 présentent également une CDF et une CDI au cours de stimulations répétées.
Les effets opposés de la CDF et de la CDI tendent à stabiliser l'amplitude du courant calcique ICa, ce qui est important car l'entrée de Ca2+ par CaV2.1 est étroitement couplée à l'activation de canaux K+ dépendants du Ca2+ (KCa), qui participent au contrôle de la fréquence de décharge des cellules de Purkinje.
En limitant les variations de cette décharge, l'équilibre entre CDF et CDI contribue ainsi à maintenir une activité régulière des cellules de Purkinje, importante pour le traitement cérébelleux et la coordination des mouvements.


 modulations directes des CaV par les sous-unités β).